

云序BID-seq助力Circulation(IF 41.3)重磅|首篇肺高压单碱基Ψ修饰图谱研究,解码PUS7/TGFBI血管重塑机制
RNA修饰往期回顾
IF 81.2《STTT》重磅!m6A MeRIP-seq+scRNA-seq:揭秘METTL3驱动胰腺腺泡细胞癌进展的分子机制
《Mol Cancer》重磅发文:从机制到临床新靶点,系统解析RNA修饰在肿瘤演变中的核心价值
IF=81.2!TOP10期刊重磅:云序客户揭示TRMT10C调控m1A修饰新机制,为骨质疏松患者带来新希望
引 言
肺高压(PH)是一种以进行性肺血管重塑和肺血管阻力升高为特征的心血管疾病。根据世界肺高压研讨会分类,继发于慢性肺病或低氧的PH被归为第3组PH。随着慢阻肺、间质性肺病、肺纤维化合并肺气肿等疾病负担增加,第3组PH患病率持续上升,但有效靶向治疗仍十分有限。肺动脉内皮细胞(PAEC)功能障碍被认为是疾病启动的关键事件:低氧等病理刺激可触发PAEC促炎和促增殖信号,并进一步驱动肺动脉平滑肌细胞(PASMC)增殖。然而,低氧诱导PAEC功能障碍的精细分子机制及细胞间通讯网络仍不清楚。
假尿苷(Ψ)是RNA中最丰富的转录后修饰之一,广泛分布于多种RNA。与经典尿苷的N1-C1键不同,Ψ通过C5-C1键连接尿嘧啶碱基与核糖环,这种C-C糖苷键使其具有更强稳定性和独特碱基配对特性,可调控RNA稳定性、结构和功能。肿瘤样本中可见Ψ水平升高,而PH与肿瘤共享增殖特征,提示Ψ可能参与PH发病。但Ψ在低氧诱导PH血管重塑中的作用此前从未被研究。
2026年9月1日,南方科技大学医学院人类细胞生物和遗传学系聂晓伟教授团队在国际心血管领域顶级权威期刊Circulation IF 41.3发表题为“PUS7-Mediated Pseudouridylation of TGFBI Drives Vascular Remodeling in Pulmonary Hypertension”的重磅成果。该研究借助云序生物BID-seq等技术,首次绘制PH肺组织单碱基分辨率Ψ修饰图谱,研究团队发现假尿苷化失调常由假尿苷酸合酶(PUSs)异常表达或活性驱动,PUS7在PH中显著上调,并揭示HIF-2α/PUS7/TGFBI/PI3K-AKT正反馈环驱动PAEC功能障碍和血管重塑,提供了PUS7小分子抑制剂NSC107512这一潜在治疗策略。
标题:PUS7-Mediated Pseudouridylation of TGFBI Drives Vascular Remodeling in Pulmonary Hypertension;PUS7介导TGFBI假尿苷化驱动肺高压血管重塑
发表时间:2026/09/01
发表期刊:Circulation
研究方法:BID-seq;RNA-seq;scRNA-seq;RIP-seq等。
文章链接:PUS7-Mediated Pseudouridylation of TGFBI Drives Vascular Remodeling in Pulmonary Hypertension
研 究 摘 要
研究新发现(What Is New)
1. 研究首次绘制了单碱基分辨率假尿苷(Ψ)修饰图谱,揭示PH患者肺血管重塑中存在全局性Ψ修饰失调,并确定PUS7是PH的表观遗传驱动因子。
2. 鉴定出HIF-2α/PUS7/TGFBI/PI3K-AKT正反馈环:HIF-2α激活PUS7转录,PUS7通过TGFBI mRNA第688位点Ψ修饰增强其稳定性,进而激活PI3K-AKT,驱动进行性血管重塑。
3. 通过遗传学和药理学干预,验证PUS7是PH的重要治疗靶点。
临床意义(What Are the Clinical Implications)
1. PUS7可作为PH治疗靶点,TGFBI第688位点Ψ修饰可作为PH诊断生物标志物。
2. PUS7在肺动脉内皮细胞(PAEC)中富集,特异性PUS7抑制剂NSC107512治疗安全性较好,脱靶效应低。
3. HIF-2α/PUS7/TGFBI/PI3K-AKT正反馈环为PH的进行性加重提供了机制解释。
技术路线
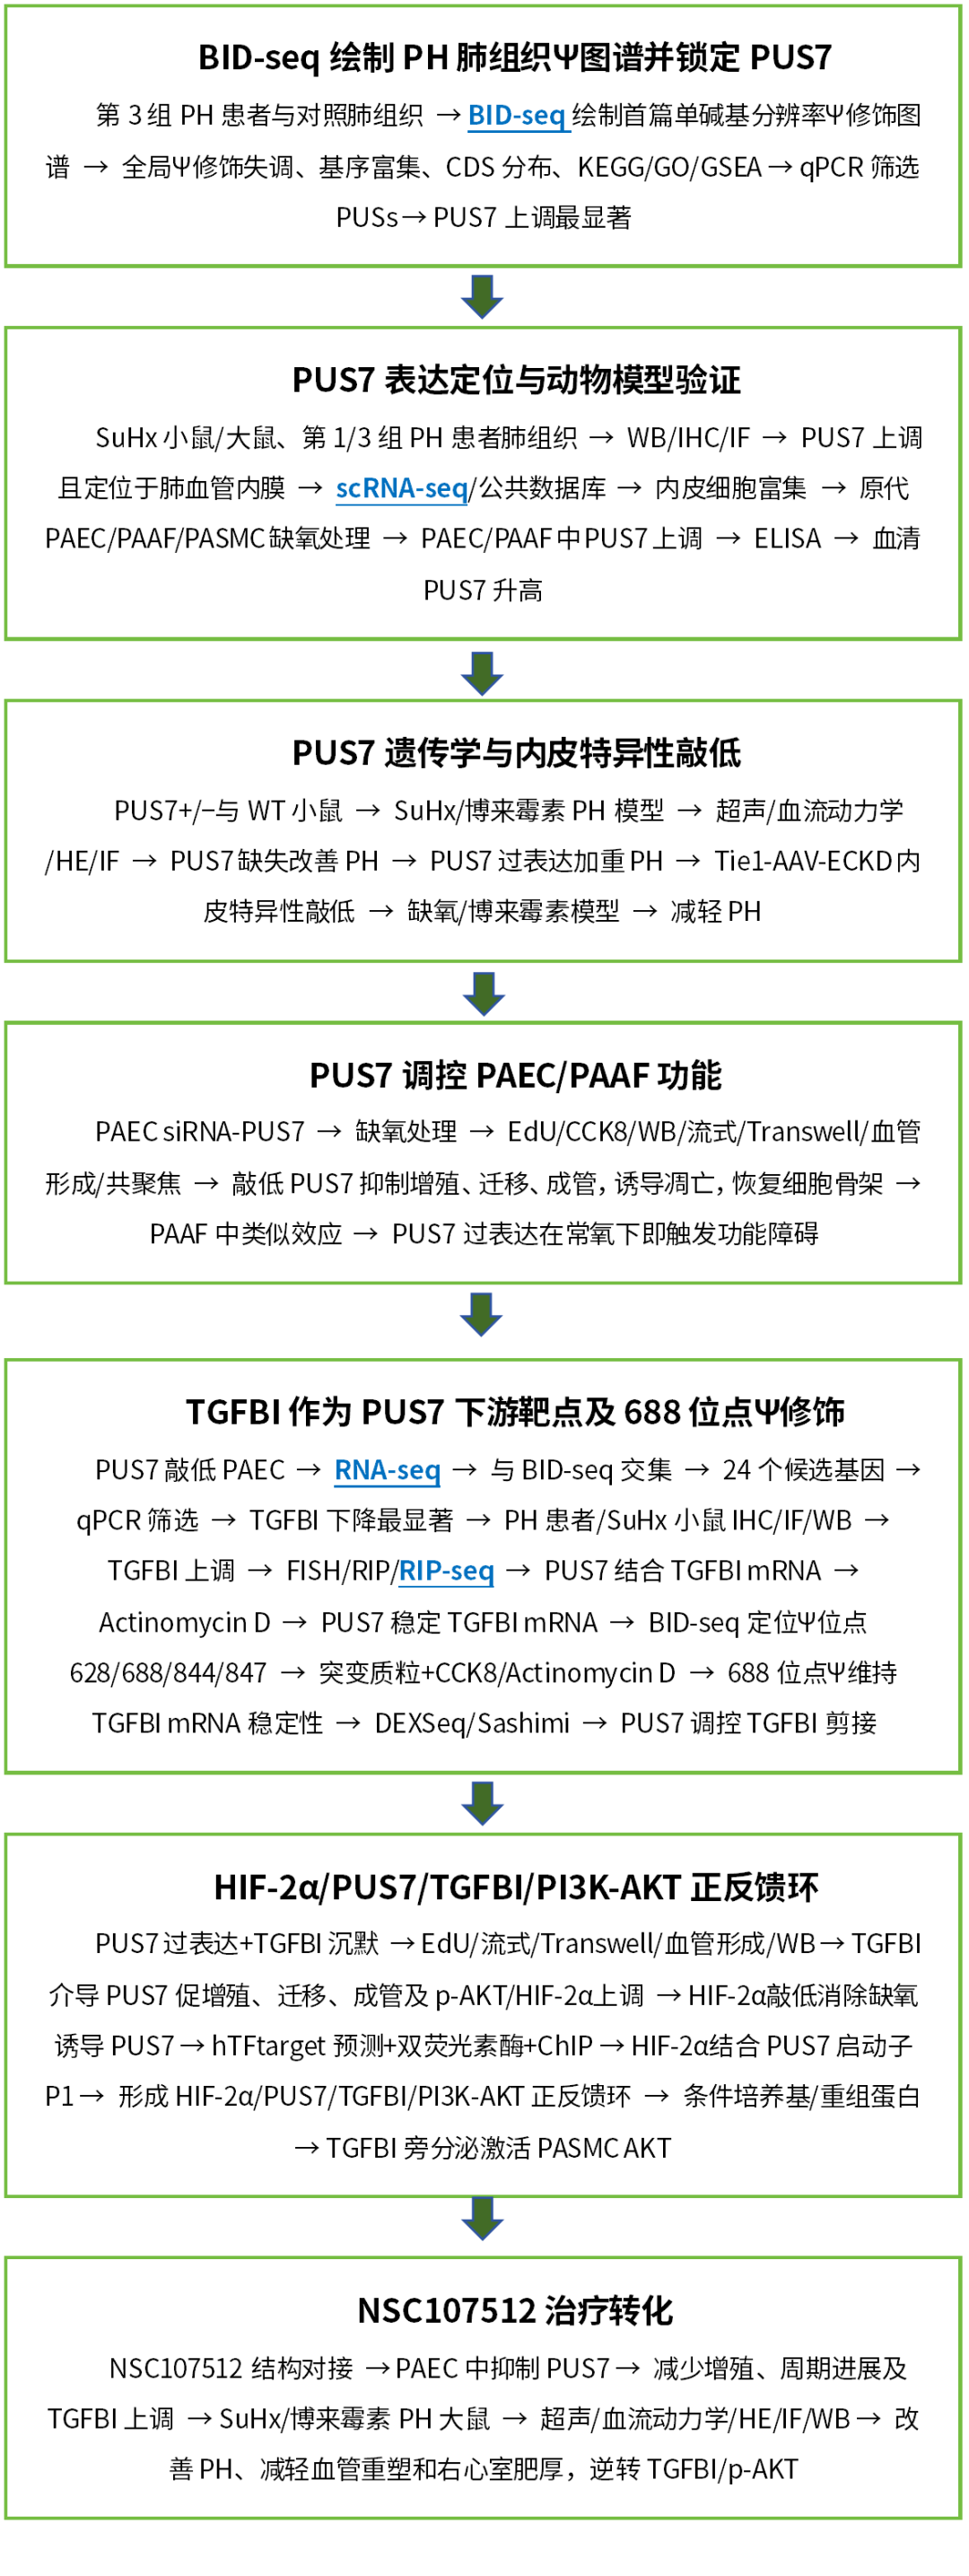
研究结果
BID-seq绘制首篇PH肺组织Ψ单碱基图谱:全局Ψ修饰失调
为了回答“PH中Ψ修饰是否失调”这一核心问题,研究团队对5例第3组PH患者和5例对照供体肺组织进行了BID-seq。BID-seq是一种能够在单碱基分辨率上检测Ψ修饰的新技术,相比传统方法具有更高的精度和定量能力,这也是该研究能够绘制首篇PH肺组织Ψ图谱的前提。转录组分析显示,PH患者存在大量Ψ修饰mRNA(Fig.1A)。修饰位点侧翼序列富集GCTA和GCAT基序(Fig.1B),高频修饰出现在UGΨGU、AGΨGG、UGΨGG和GGΨGG等基序中(Fig.1C)。Ψ修饰概率图显示,对照组许多位点集中于Ψ ratio为0,而PH组在0–0.25区间分布频率更高,提示PH中Ψ水平整体升高(Fig.1D)。这一结果说明,Ψ修饰并非个别基因的偶然变化,而是全局性失调。此外,60.8%的修饰位于编码区(CDS;Fig.1E),提示这些修饰可能直接影响mRNA的稳定性和翻译效率。
KEGG和GO富集分析显示,这些基因富集于细胞外基质-受体相互作用、细胞黏附分子、PI3K-AKT信号和血管生成等通路(Fig.1F、1G);GSEA进一步显示TGF-β响应和细胞外基质组织通路显著富集(Fig.1H)。这些通路恰好是肺血管重塑的核心环节,提示Ψ修饰失调可能通过调控这些通路参与PH致病。随后,研究检测功能明确的PUSs,qPCR证实PUS7在第3组PH患者肺组织中显著上调,且上调幅度高于其他PUSs(Fig.1I–1M)。从讨论角度看,PUS7的上调可能不是伴随现象,而是驱动Ψ修饰失调的关键酶。这为后续功能验证提供了明确方向。
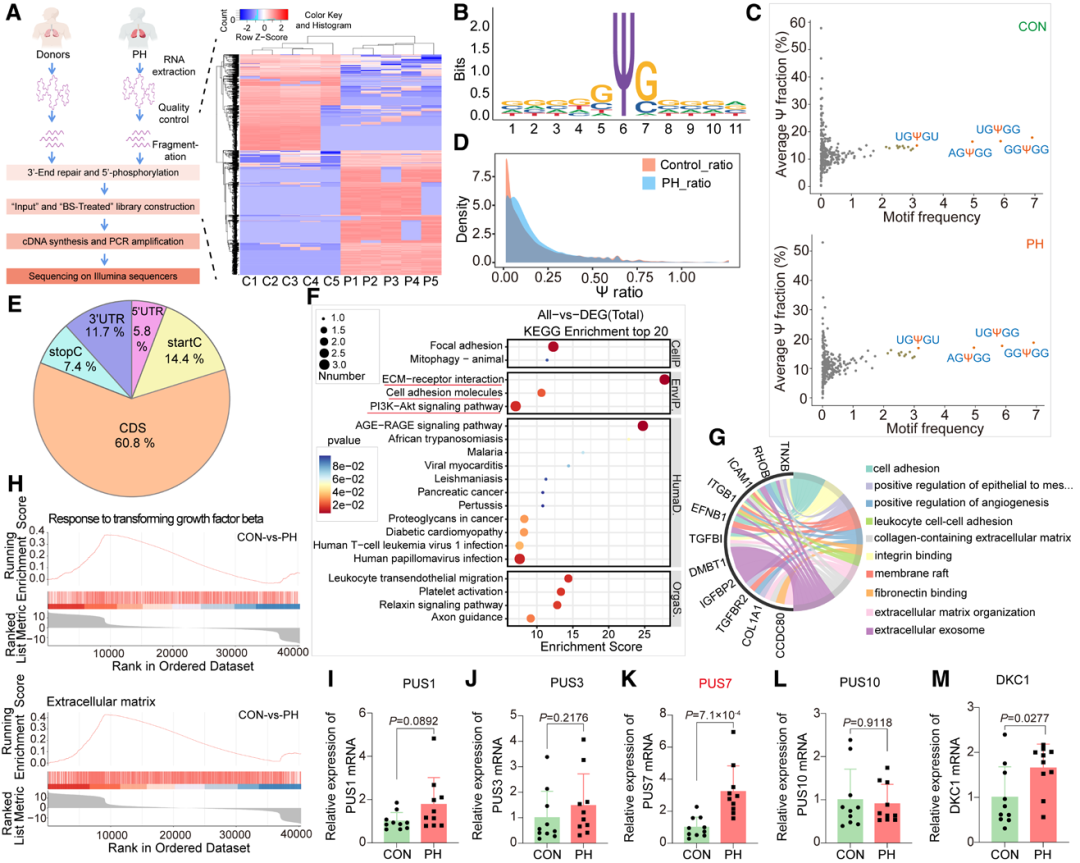
图1. PH肺组织中的Ψ修饰
a. 亚硫酸氢盐诱导缺失测序(BID-seq)显示第3组肺高压(PH)患者(n=5)肺组织mRNA中假尿苷(Ψ)修饰水平。
b. PH组中Ψ修饰mRNA的基序分布特征。
c. 散点图展示供体和PH患者中Ψ修饰基序的频率。
d. Ψ修饰概率图。x轴为Ψ ratio,y轴为概率密度;概率密度越高表明该比值在相应组中出现的可能性越大。
e. Ψ修饰在mRNA不同区域的频率分布。
f–h. 采用KEGG(f)、GO(g)和GSEA(h)分析,阐明Ψ修饰mRNA相关的生物学功能和信号通路。
i–m. qRT-PCR分析第3组PH患者(n=10)肺组织中假尿苷酸合酶的表达。
PUS7在PH患者和模型中上调,并富集于肺动脉内皮细胞
在明确全局Ψ修饰失调后,研究者进一步验证PUS7的表达定位。Western blotting显示,PUS7在缺氧联合SU5416(SuHx)PH小鼠/大鼠模型以及第1组和第3组PH患者肺组织中均上调(Fig.2A–2C)。免疫组化和免疫荧光证实PUS7明显上调,且主要定位于肺血管内膜(Fig.2D–2F)。这一空间分布非常重要,因为肺血管内膜正是内皮细胞所在区域,提示PUS7可能在内皮功能障碍中扮演关键角色。第3组PH患者肺组织单细胞RNA测序显示,PUS7在内皮细胞中特异且显著上调(Fig.2G、2H),与公共数据库(GSE210248、GSE169477、GSE169471)中肺动脉高压患者的表达模式一致,说明PUS7在不同PH亚组PAEC中均上调。这种跨亚组的一致性提示PUS7可能是一个共同的病理节点,而不仅仅是第3组PH的特有现象。
原代细胞中,缺氧可显著上调PAEC和肺动脉外膜成纤维细胞(PAAF)中的PUS7,而PASMC中不明显(Fig.2I–2K)。免疫染色显示缺氧PAEC的核和质PUS7均增加(Fig.2L)。ELISA还发现第3组PH患者血清PUS7水平显著升高,提示其可能作为微创诊断指标。从转化医学角度看,血清PUS7的升高为PH的无创诊断提供了潜在生物标志物,但还需更大样本验证其敏感性和特异性。
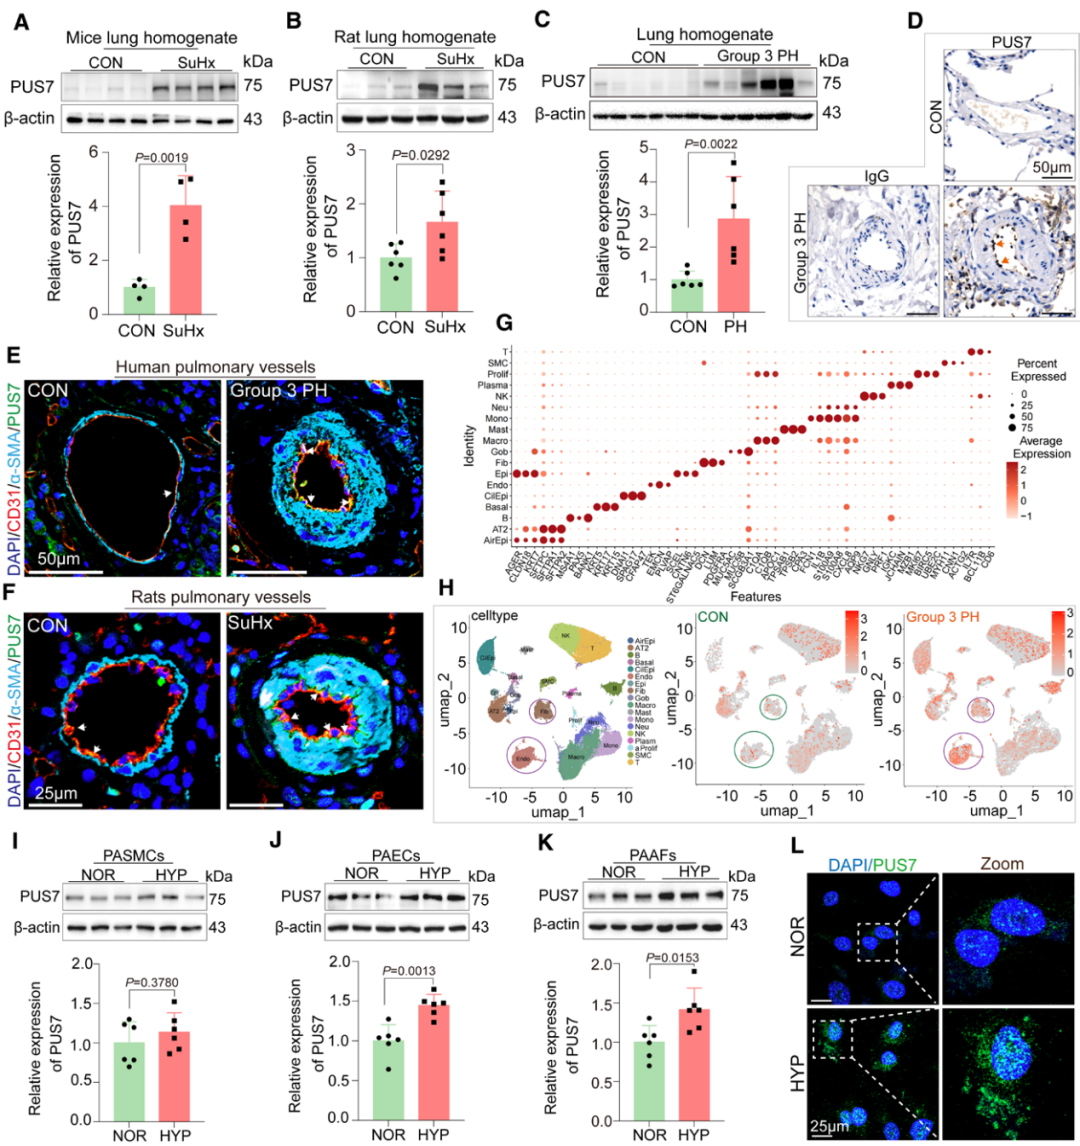
图2:PUS7在PH动物模型和患者的肺组织及肺动脉中上调
a–c. 代表性Western blot显示假尿苷酸合酶7(PUS7)在SU5416/缺氧(SuHx)诱导的啮齿类肺高压(PH)模型(a,n=4只雄性小鼠;b,n=6只雄性大鼠)和PH患者(c,n=6例患者)肺组织中的表达。
d. 免疫组化显示PUS7在健康供体和PH患者肺组织中的表达。
e和f. 代表性共聚焦图像显示PH患者(e)或SuHx处理大鼠(f)肺切片免疫组化染色。细胞核用DAPI(蓝色)染色。
g. 点图展示通过Find All Markers功能鉴定的细胞簇中标记基因的表达。
h. UMAP可视化展示第3组PH和对照组(CON)的细胞聚类及PUS7基因表达分布。
i–k. 代表性Western blot及定量分析缺氧肺动脉平滑肌细胞(PASMC;i)、肺动脉内皮细胞(PAEC;j)和肺动脉外膜成纤维细胞(PAAF;k)中PUS7和β-actin的表达(n=6生物学重复)。
l. 代表性共聚焦图像显示缺氧PAEC中PUS7(绿色)的免疫组化染色。细胞核用DAPI(蓝色)染色。
基因敲除小鼠验证PUS7缺失改善PH
接下来,为了验证PUS7的致病功能,研究采用PUS7杂合子(PUS7+/−)和野生型小鼠评估PUS7在SuHx诱导PH中的作用(Fig.3A)。由于PUS7纯合敲除致死,杂合子模型成为研究其体内功能的重要工具。Western blotting确认敲除效率(Fig.3B)。PUS7缺失不影响正常及SuHx/博来霉素处理下小鼠体重(Fig.3C),说明PUS7缺失未引起明显全身毒性。SuHx或博来霉素处理显著损害肺动脉速度-时间积分、三尖瓣环收缩期位移、肺动脉加速时间/射血时间比,并升高右心室收缩压和右心室/左心室+室间隔重量比;这些效应在PUS7+/−小鼠中明显改善(Fig.3D–3I)。PUS7缺失小鼠还表现为血管中膜和右心室壁更薄、α-SMA表达更低、肌化肺动脉更少(Fig.3J–3O)。这些结果从遗传学角度证明PUS7是PH血管重塑的重要驱动因子。此外,PUS7过表达在常氧下即可引起轻度肺高压病理,在PH模型中进一步加重,说明PUS7表达水平与疾病严重程度相关。这提示PUS7不仅是“允许”因素,更可能是“驱动”因素。
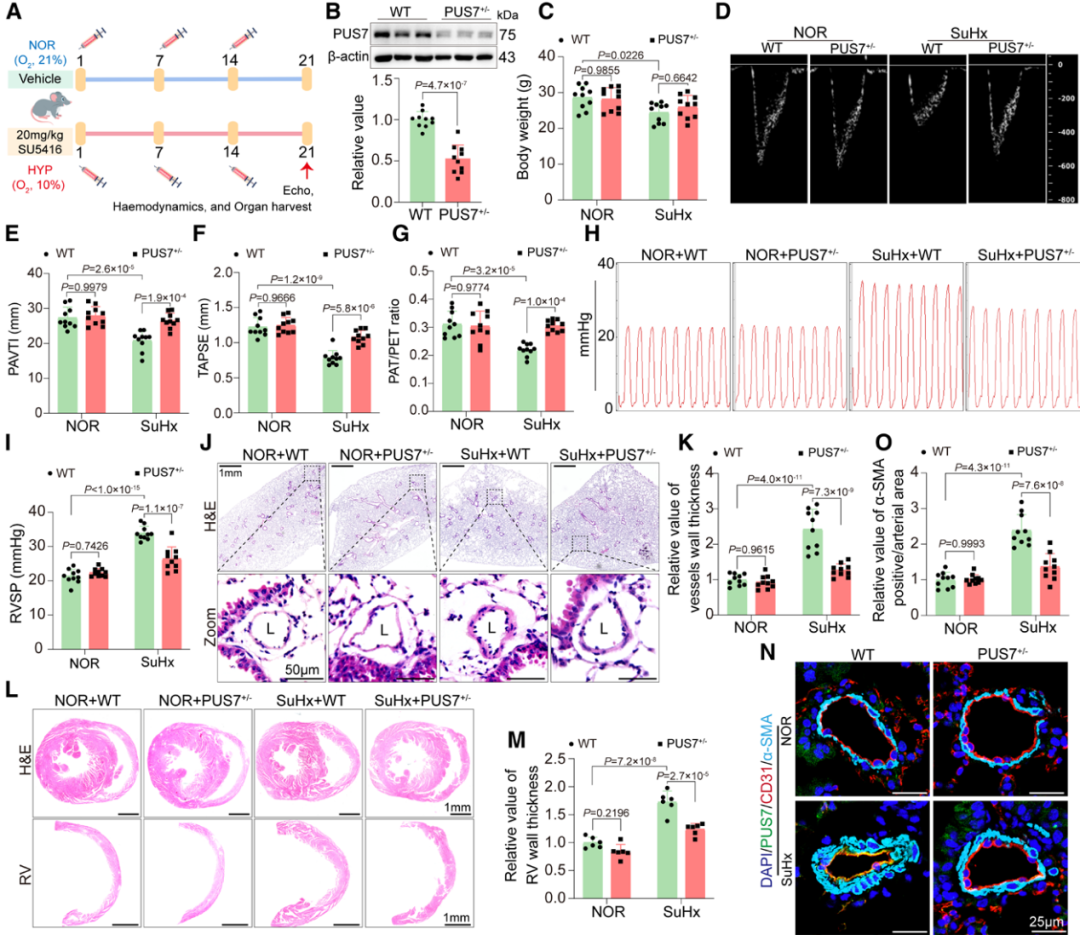
图3:PUS7缺失改善SuHx诱导的小鼠PH
a. 慢性缺氧联合SU5416(SuHx)诱导肺高压(PH)模型的动物处理方案示意图。假尿苷酸合酶7(PUS7)+/+(野生型[WT])和PUS7+/−小鼠置于缺氧环境21天,并在第1、7、14天注射SU5416(20 mg/kg)。
b. 代表性Western blot及定量分析WT和PUS7+/−小鼠肺组织中PUS7和β-actin的表达。
c. 组间分析显示PUS7敲低对小鼠体重无显著影响。
d–g. 代表性超声心动图图像(d)及组间数据,显示PUS7+/−减轻SuHx处理小鼠肺动脉速度-时间积分(PAVTI;e)、三尖瓣环收缩期位移(TAPSE;f)和肺动脉加速时间/射血时间比(PAT/PET;g)的下降。
h和i. 代表性血流动力学描记图及组间分析,显示PUS7+/−对SuHx小鼠模型右心室(RV)收缩压(RVSP)的影响。
j–o. 苏木精-伊红(H&E)和免疫荧光染色显示,PUS7敲低显著改善SuHx诱导的小鼠中膜增厚(j和k)、右心室壁增厚(l和m)及血管肌化(n和o)。
内皮特异性敲低:AAV-ECKD缓解PH
为明确内皮PUS7的作用,研究使用Tie1启动子驱动的AAV实现内皮细胞特异性PUS7敲低(AAV-ECKD;Fig.4A)。超声显示,AAV-ECKD显著减轻缺氧或博来霉素诱导的肺动脉速度-时间积分、肺动脉加速时间/射血时间比和三尖瓣环收缩期位移损害(Fig.4B–4D),并降低右心室收缩压和右心室/左心室+室间隔重量比(Fig.4E–4G)。形态学分析显示,AAV-ECKD明显减轻缺氧或博来霉素诱导的肺动脉肌化和血管中膜增厚(Fig.4H、4I)。这些结果证明,内皮特异性沉默PUS7可在体内显著减轻PH进展。从讨论角度看,内皮细胞特异性干预的有效性,进一步支持PAEC是PUS7致病作用的主要靶细胞,也为未来开发内皮靶向递送系统提供了依据。
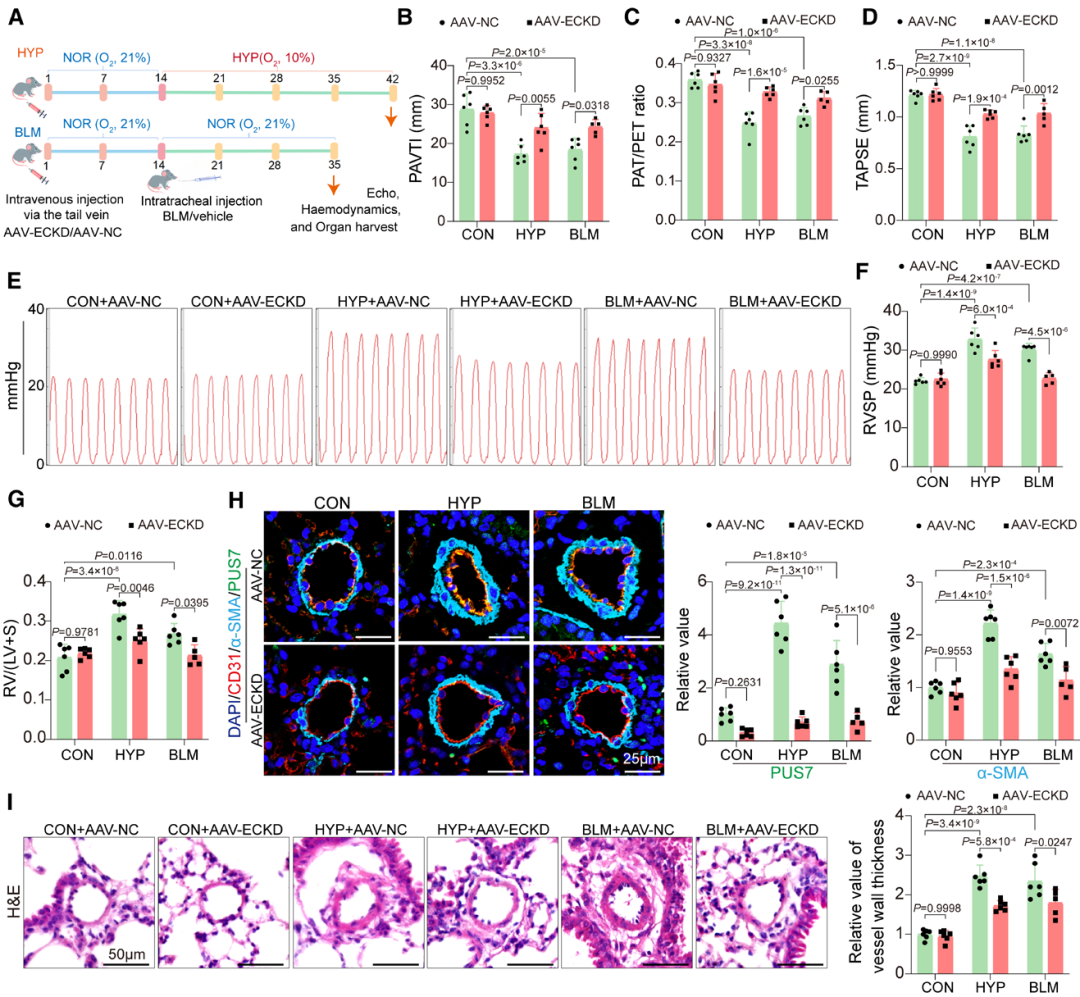
图4:内皮细胞特异性沉默PUS7减轻缺氧或博来霉素诱导的小鼠PH
a. 方案示意图。小鼠接受单次尾静脉注射Tie1启动子驱动的腺相关病毒载体LungX,用于内皮细胞特异性敲低假尿苷酸合酶7(PUS7)(AAV-ECKD)或AAV阴性对照(NC),置于常氧(NOR)条件14天,随后进行缺氧(HYP)处理28天,或经气管内给予博来霉素(BLM)并在常氧下维持21天。
b–d. 组间分析显示,缺氧或BLM诱导的肺高压(PH)小鼠模型中肺动脉速度-时间积分(PAVTI;b)、肺动脉加速时间/射血时间比(PAT/PET;c)和三尖瓣环收缩期位移(TAPSE;d)下降,而这些参数在AAV-ECKD小鼠中改善。
e–g. 代表性血流动力学描记图及组间分析,显示内皮特异性PUS7沉默对缺氧或BLM处理PH小鼠模型右心室收缩压(RVSP;e;f,统计分析)和右心室/左心室+室间隔重量比[RV/(LV+S);g]的影响。
h和i. 免疫荧光染色和苏木精-伊红(H&E)染色显示,PUS7敲低显著改善缺氧或BLM诱导的血管肌化增加(h)和中膜增厚(直径25–75 μm;i)。
PUS7调控PAEC/PAAF病理功能障碍
随后,在细胞层面,研究评估PUS7对PAEC和PAAF功能障碍的影响。在PAEC中,研究设计PUS7 siRNA并经qPCR和Western blotting验证(Fig.5A)。EdU、Western blotting和CCK8实验显示,SI-PUS7显著减轻缺氧诱导的过度增殖(Fig.5B–5G)。流式细胞术显示SI-PUS7阻止G1向S期转换(Fig.5H),并增加缺氧PAEC凋亡(Fig.5I)。Transwell和血管形成实验表明,SI-PUS7减轻缺氧诱导的过度迁移和血管生成能力增强(Fig.5J–5M)。PUS7还明显改变细胞骨架结构:缺氧人PAEC中应力纤维紊乱,paxillin分布不清;SI-PUS7可逆转这些异常,恢复应力纤维和黏着斑定位(Fig.5N、5O)。PAAF中也有类似效应,PUS7沉默可抑制缺氧诱导的过度增殖。持续PUS7过表达在常氧下即可触发PAEC功能障碍。这些结果说明,PAEC中的PUS7在低氧诱导PH中发挥关键作用。从机制讨论看,PUS7可能通过调控细胞周期和凋亡相关基因的Ψ修饰,改变内皮细胞的稳态,使其从静止状态转向增殖和迁移状态,这是血管重塑的早期细胞学基础。
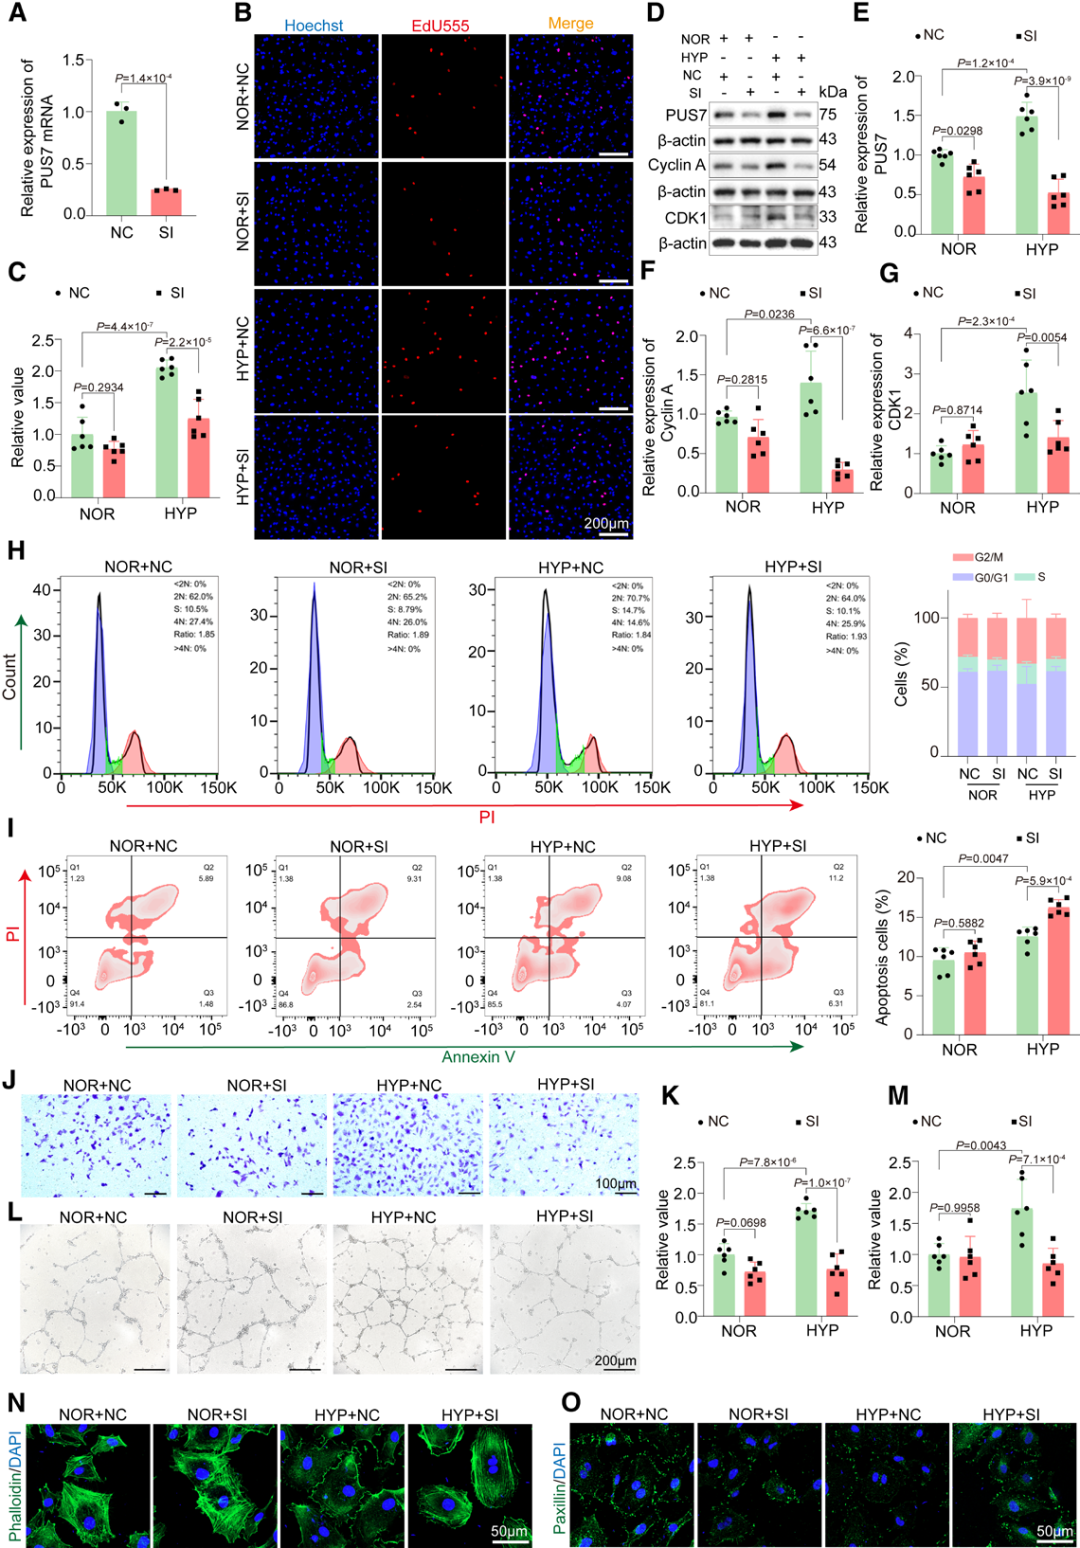
图 5:PUS7缺失减轻缺氧诱导的PAEC功能障碍
a. qRT-PCR分析PUS7 siRNA在PAEC中的敲低效率(n=3生物学重复)。
b–c. 代表性EdU染色及组间数据,显示抑制PUS7减少缺氧诱导的PAEC增殖。
d–g. 代表性Western blot及组间数据,显示缺氧下PUS7沉默后PAEC中PUS7、cyclin A和CDK1表达。
h–i. 流式细胞术显示抑制PUS7对缺氧PAEC细胞周期(h)和凋亡(i)的影响。
j–k. Transwell分析显示PUS7沉默后缺氧PAEC的迁移能力。
l–m. 血管形成实验显示PUS7敲低后缺氧PAEC的血管生成能力。
n–o. 共聚焦显微镜显示PUS7敲低对PAEC细胞骨架结构的影响,细胞用phalloidin(n)或paxillin(o)染色。
TGFBI是PUS7关键下游靶点,位点688 Ψ维持mRNA稳定性
为了锁定PUS7下游靶点,研究对PUS7敲低PAEC进行RNA高通量转录组测序(Fig.6A、6B)。由于Ψ修饰增强RNA稳定性,研究者将PUS7敲低后下调基因与BID-seq中仅在PH患者存在Ψ修饰的基因取交集,鉴定出24个重叠基因(Fig.6C)。这种多组学交集策略有效缩小了候选范围,也体现了BID-seq在靶点发现中的价值。经富集分析,选择TGFBI、IL6ST、BCL2L12和TACC1验证。qPCR显示PUS7敲低显著降低TGFBI、BCL2L12和TACC1,其中TGFBI下降最明显(Fig.6D)。免疫组化、免疫荧光和Western blotting证实TGFBI在PH患者肺组织(Fig.6E–6G)和SuHx小鼠(Fig.6H)中上调。PUS7敲低可调节PAEC中TGFBI表达(Fig.6I)。FISH显示PUS7与TGFBI mRNA明显共定位(Fig.6J)。RIP和RIP-seq证明PUS7直接结合TGFBI mRNA(Fig.6K)。Actinomycin D实验显示PUS7过表达减少TGFBI mRNA降解(Fig.6L)。这些结果从结合、定位到稳定性多个层面证明PUS7直接调控TGFBI。
进一步,通过BID-seq缺失率分析,研究者发现TGFBI潜在Ψ修饰高分位点:628、688、844和847(Fig.6M)。CCK8显示TGFBI过表达48小时可拯救PUS7敲低导致的细胞活力下降,但携带688位点突变的TGFBI mRNA则失去该效应(Fig.6N)。Actinomycin D追踪显示U688C突变显著缩短TGFBI mRNA半衰期,假尿苷化缺陷突变体降解加速,半衰期较WT缩短约40%–50%。这表明688位点Ψ修饰对维持TGFBI mRNA稳定性必不可少。研究还发现PUS7可影响TGFBI前体mRNA剪接:SI-PUS7使E010、E011、E023、E027和E031等外显子表达降低(Fig.6O),并显著改变TGFBI选择性3′剪接位点和内含子保留事件(Fig.6P、6Q)。因此,PUS7可能通过Ψ修饰增强TGFBI前体mRNA剪接效率,加速其成熟为功能性mRNA。从讨论角度看,TGFBI作为一种基质细胞蛋白,参与细胞黏附和细胞外基质相互作用,其上调可能直接促进内皮-间充质转化和血管壁纤维化,这与PH中观察到的血管重塑高度吻合。此外,位点特异性Ψ修饰的发现,为开发靶向该位点的精准干预策略提供了可能。
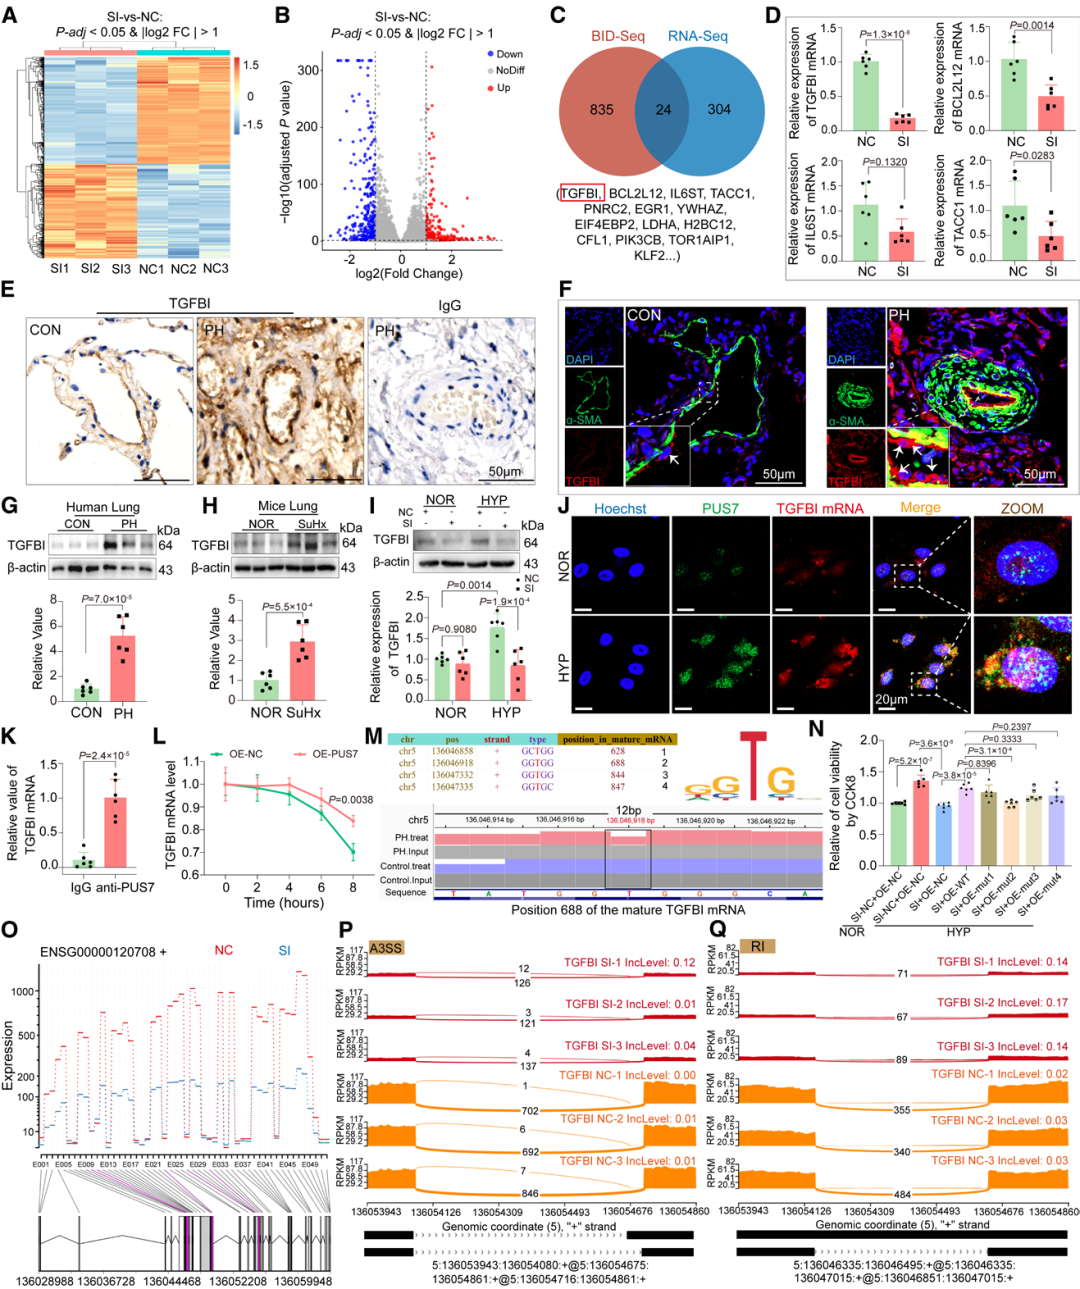
图6:PUS7通过Ψ修饰TGFBI mRNA调控PAEC功能
a和b. 热图(a)和火山图(b)展示假尿苷酸合酶7(PUS7)缺失导致肺动脉内皮细胞(PAEC)中差异基因表达。
c. 韦恩图显示亚硫酸氢盐诱导缺失测序(BID-seq)与RNA高通量转录组测序(RNA-seq)之间的排名靠前重叠基因。
d. qRT-PCR分析显示PUS7敲低后PAEC中候选基因表达。
e和f. 免疫组化(e)和免疫组化染色(f)显示,与健康供体相比,转化生长因子-β诱导蛋白(TGFBI)在肺高压(PH)患者肺动脉内膜中高表达。
g和h. Western blotting分析显示TGFBI在PH患者肺组织(g)和缺氧(HYP)联合SU5416(SuHx)PH小鼠模型(h)中的表达。
i. 代表性Western blot及组间结果展示缺氧条件下PUS7敲低后PAEC中TGFBI的表达。
j. 代表性共聚焦图像显示缺氧PAEC中PUS7(绿色)和TGFBI mRNA荧光探针(红色)的荧光原位杂交染色。细胞核用Hoechst(蓝色)染色。
k. RNA免疫沉淀实验显示PUS7可直接结合TGFBI mRNA。
l. Actinomycin D实验显示PUS7过表达(OE)稳定TGFBI mRNA水平。
m. 图示BID-seq检测到的TGFBI mRNA中假尿苷(Ψ)修饰位点。
n. CCK8分析显示缺氧条件下,PUS7 siRNA与携带Ψ修饰位点突变型或野生型TGFBI mRNA的表达质粒共转染后PAEC的细胞活力。
o. 通过DEXSeq包分析的RNA高通量转录组测序(RNA-seq)数据中外显子使用的差异;x轴显示外显子位置,y轴显示两组外显子表达。右上角为组别颜色编码。x轴上的紫红色表示组间外显子使用存在显著差异。
p和q. Sashimi图展示对照组(CON;阴性对照[NC];橙色)和PUS7沉默(PUS7 siRNA [SI];红色)样本中TGFBI的选择性3′剪接位点(A3SS;p)和保留内含子(RI;q)事件。
机制:HIF-2α/PUS7/TGFBI/PI3K-AKT正反馈环与内皮-平滑肌旁分泌
在机制上,研究进一步解析PUS7下游信号网络。TGFBI沉默可消除PUS7过表达诱导的PAEC增殖加速、细胞周期进展和凋亡减少(Fig.7A–7C)。Transwell和血管形成实验证实,沉默TGFBI可逆转PUS7过表达诱导的迁移和血管生成(Fig.7D、7E)。Western blotting显示,PUS7过表达显著上调磷酸化AKT和HIF-2α,而沉默TGFBI可阻断这一效应(Fig.7F、7G)。PAAF中PUS7沉默同样减弱缺氧诱导的TGFBI上调和AKT磷酸化。值得注意的是,HIF-2α敲低可消除缺氧诱导的PUS7上调,提示HIF-2α与PUS7互相调控(Fig.7H、7I)。生信分析显示HIF-2α可结合PUS7启动子(Fig.7J);双荧光素酶报告实验显示,共转染HIF-2α和WT PUS7启动子质粒显著增加荧光素酶活性,而预测结合位点突变则消除该效应(Fig.7K)。ChIP实验进一步证实HIF-2α特异性结合PUS7启动子P1区域(Fig.7L)。
因此,研究提出以下机制模型:
1. 低氧诱导HIF-2α上调,HIF-2α结合PUS7启动子促进PUS7表达;
2. PUS7催化TGFBI mRNA位点特异性Ψ修饰,增强其稳定性与剪接成熟;
3. TGFBI上调激活PI3K-AKT信号,促进PAEC增殖、迁移和血管生成;
4. PI3K-AKT-mTORC2稳定HIF-2α,形成HIF-2α/PUS7/TGFBI/PI3K-AKT正反馈环,持续放大血管重塑;
5. 重组蛋白和条件培养基实验证明,TGFBI作为主要旁分泌介质,由内皮PUS7驱动,激活邻近PASMC的AKT信号,促进平滑肌增殖和血管重塑。
从讨论角度看,这一正反馈环的发现具有重要理论意义。它解释了为什么PH一旦启动,即使初始低氧刺激解除,血管重塑仍可持续进展。这种“记忆”效应可能与表观修饰的稳定性有关,因为Ψ修饰本身是相对稳定的化学修饰,不易被逆转。此外,内皮-平滑肌旁分泌轴的揭示,将PAEC功能障碍与PASMC增殖直接联系起来,完善了PH血管重塑的细胞间通讯网络。未来或可针对该环路的多个节点进行联合干预,以提高治疗效果。
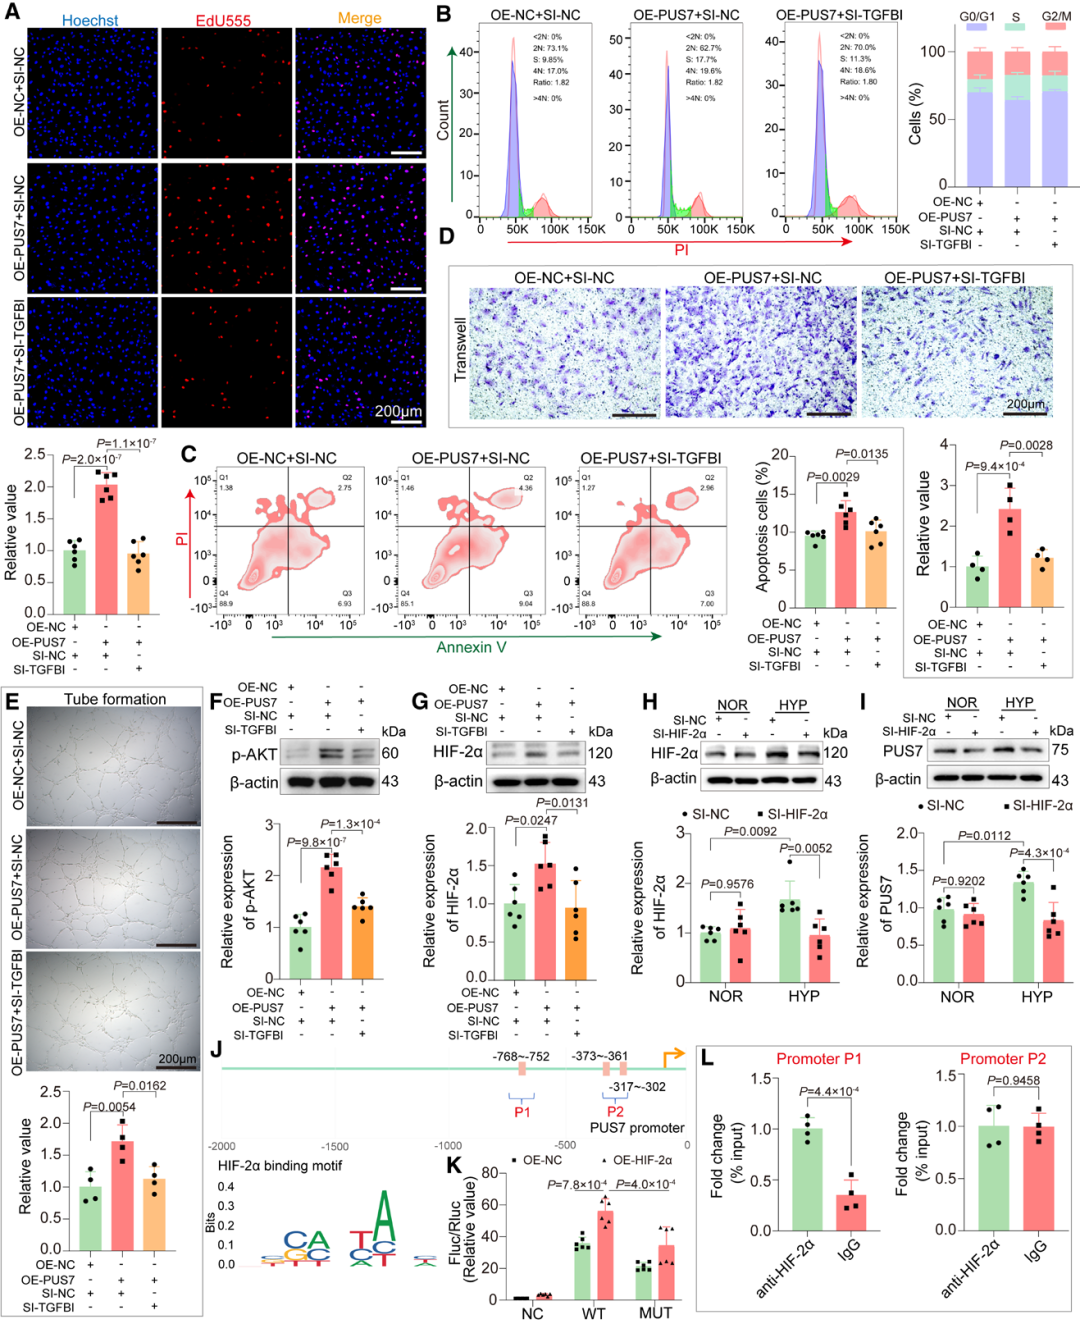
图7:HIF-2α/PUS7/TGFBI/PI3K-AKT信号轴进行性加重肺高压
a–e. 沉默SI-TGFBI(TGFBI siRNA)消除了假尿苷酸合酶7(PUS7)过表达(OE)在肺动脉内皮细胞(PAEC)中的作用。a. EdU实验:细胞增殖;b和c. 流式细胞术分析:细胞周期(b)和凋亡(c);d. Transwell实验:迁移能力;e. 血管形成实验:血管生成能力。
f–i. 代表性Western blot及定量分析,显示沉默SI-TGFBI对磷酸化AKT(p-AKT;f)和缺氧诱导因子-2α(HIF-2α;g)表达的影响,以及SI-HIF-2α(h)对常氧(NOR)或缺氧(HYP)条件下PAEC中PUS7(i)的影响。
j. hTFtarget分析显示HIF-2α与PUS7启动子区域的结合基序。
k. 根据HIF-2α与PUS7启动子的结合位点设计双荧光素酶载体和突变质粒。双荧光素酶实验用于验证293T细胞中HIF-2α与PUS7启动子的相互作用。
l. 染色质免疫沉淀-定量实时PCR分析显示,在抗HIF-2α免疫沉淀组分中检测到PUS7启动子区域。
转化:PUS7抑制剂NSC107512改善动物PH
在治疗转化方面,研究评估了PUS7小分子抑制剂NSC107512。结构分析显示其可结合PUS7催化域(Fig.8A)。细胞实验中,NSC107512浓度依赖性地抑制PAEC增殖和细胞周期进展,并减弱缺氧诱导的TGFBI上调(Fig.8B–8D)。在SuHx及博来霉素诱导的PH大鼠模型中,NSC107512表现出剂量依赖性疗效和较低系统毒性,可改善超声与血流动力学指标,减轻血管重塑和右心室肥厚,并在体内逆转TGFBI和磷酸化AKT上调(Fig.8F–8O)。这些结果提示,NSC107512是治疗PH的潜在新药。与主要针对血管舒张的传统疗法不同,NSC107512通过抑制PUS7从源头干预血管重塑;但后续仍需药代动力学、长期毒性和大动物实验验证其临床转化潜力。
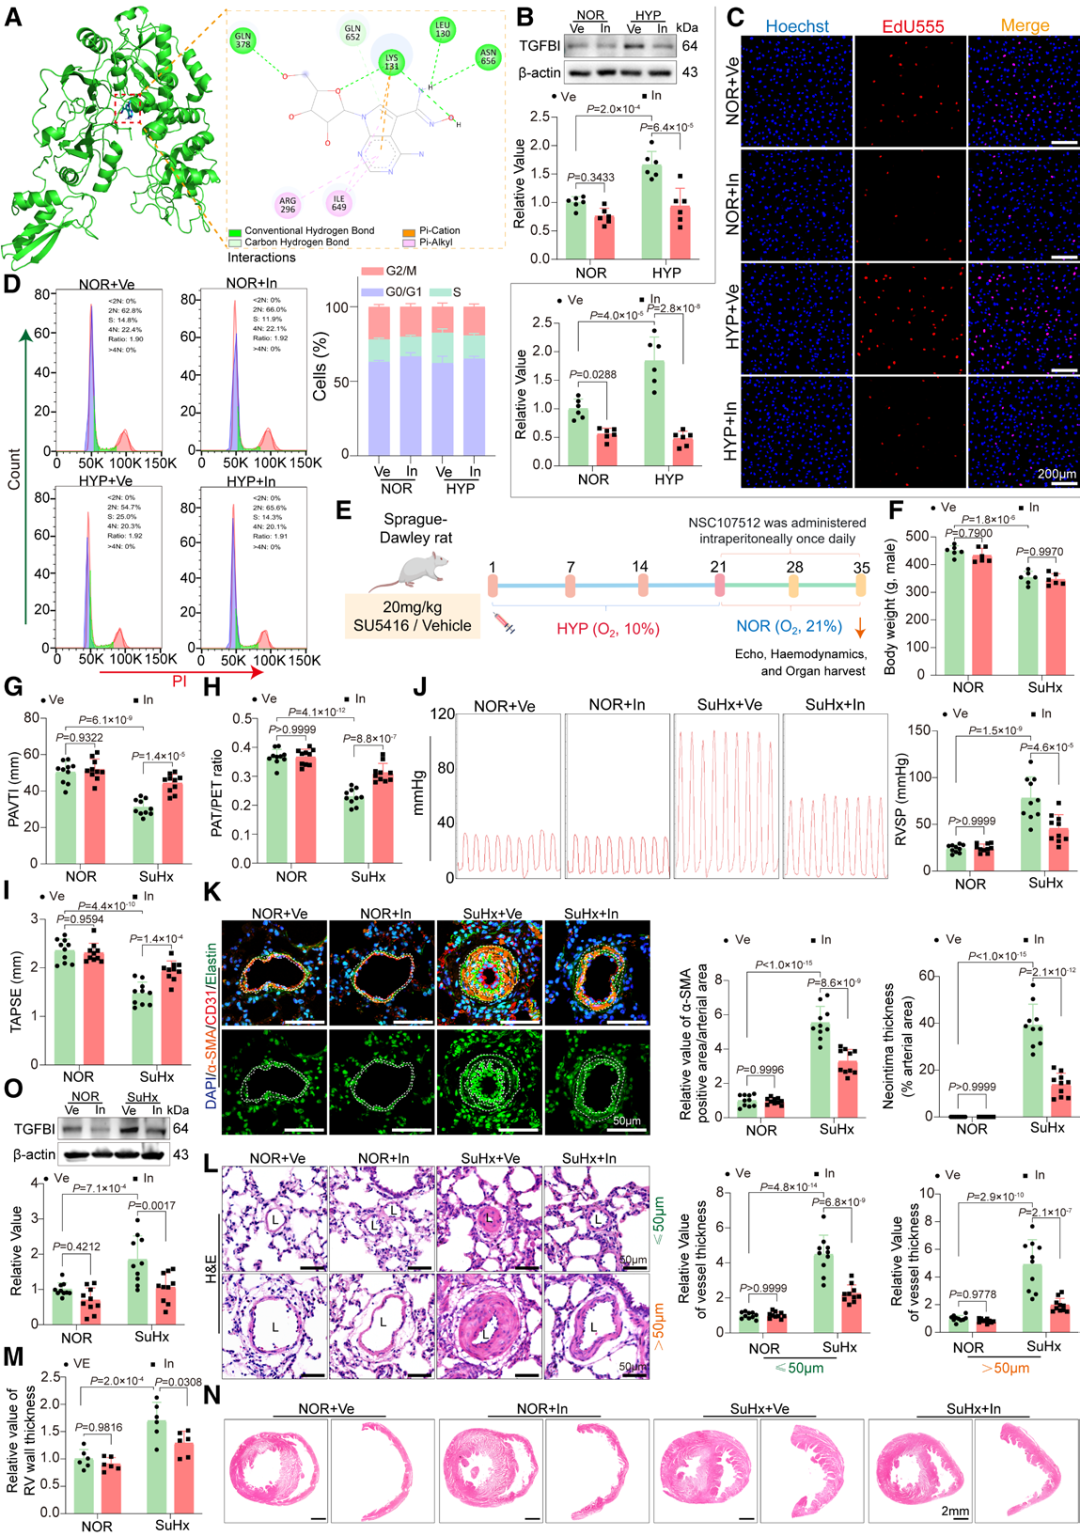
图8:NSC107512对动物模型PH的影响
a. 利用PyMOL和Discovery Studio绘制NSC107512与假尿苷酸合酶7(PUS7)蛋白相互作用中的结合结构域和特定氨基酸。
b. 代表性Western blot及组间数据,显示抑制PUS7减轻缺氧(HYP)诱导的肺动脉内皮细胞(PAEC)中转化生长因子β诱导蛋白(TGFBI)表达升高。
c. EdU分析显示NSC107512抑制PUS7减少缺氧诱导的PAEC增殖。
d. 流式细胞术分析显示NSC107512对缺氧PAEC细胞周期的影响。
e. 缺氧联合SU5416(SuHx)诱导肺高压(PH)大鼠模型的动物处理方案示意图。
f. NSC107512治疗的SuHx诱导PH大鼠体重。
g–i. 组间分析显示NSC107512抑制PUS7显著减轻SuHx大鼠肺动脉速度-时间积分(PAVTI;g)、肺动脉加速时间/射血时间比(PAT/PET;h)和三尖瓣环收缩期位移(TAPSE;i)的下降。
j. 代表性血流动力学描记图及组间分析,显示NSC107512抑制PUS7对SuHx大鼠模型右心室收缩压(RVSP)的治疗效果。
k–n. 免疫荧光和苏木精-伊红(H&E)染色显示,NSC107512抑制PUS7显著改善SuHx诱导的血管肌化和新内膜形成增加(k)、中膜增厚(l)及右心室壁增厚(m和n)。
o. 代表性Western blot及组间数据,显示抑制PUS7减轻SuHx诱导的PH大鼠模型肺组织中TGFBI表达升高。
云序小结:从RNA修饰到PH治疗新靶点
从临床意义来看,该研究首次提供了PUS7介导的假尿苷化作为PH关键表观驱动因素的证据,构建了HIF-2α/PUS7/TGFBI/PI3K-AKT信号轴,揭示其驱动PAEC功能障碍和血管重塑的机制。研究还绘制了PH肺组织首个单碱基分辨率Ψ图谱,发现Ψ修饰广泛失调并富集于血管重塑核心通路。PUS7和TGFBI第688位点Ψ修饰可分别作为PH治疗靶点和诊断生物标志物;PUS7在PAEC中富集,特异性抑制剂NSC107512安全性较好、脱靶效应低;HIF-2α/PUS7/TGFBI/PI3K-AKT正反馈环为PH进行性加重提供了机制解释。与现有主要针对血管舒张的PH疗法不同,NSC107512通过抑制PUS7从源头干预血管重塑,代表了一种治疗范式转变。此外,该研究也提示,RNA修饰酶可能成为心血管疾病治疗的新靶点类别,未来或可拓展至其他PH亚型或相关肺血管疾病。
当然,研究也存在局限:PUS7在非肌细胞中也有表达,提示其可能参与肺实质重塑,需进一步研究;患者来源PH-PAEC难以大量获取,研究使用商业来源人PAEC进行功能和机制验证;NSC107512虽具靶点特异性,但完全排除脱靶仍具挑战,未来需化学蛋白质组学验证靶点结合。
此外,Ψ修饰的写入和擦除机制、是否有阅读蛋白参与,以及在不同PH亚型中的普适性,仍需更多研究。总体而言,该研究将RNA假尿苷化修饰推向PH病理机制与治疗开发的前沿,为这一难治性疾病提供了新的生物标志物和干预靶点。从更广阔的视角看,它也为其他以血管重塑为特征的疾病提供了表观转录组学层面的研究范式。
文章相关产品
云序生物针对RNA假尿嘧啶修饰采取的是亚硫酸氢盐(BS)诱导的缺失测序法(BID-seq),可同时对Ψ修饰进行高通量检测和单碱基定位。BID-seq技术可以在不影响胞苷的情况下,将定量地转化为“Ψ-BS加合物”,导致逆转录后在Ψ位点处出现碱基缺失信号。建库测序后再根据检测标准进行数据处理和分析,来实现单碱基分辨率下对RNA上Ψ修饰的定量测序,BID-seq技术将有助于研究RNA上修饰在诸多生理或病理过程中的位点分布、修饰化程度动态变化、生物学功能等。
单细胞转录组测序技术(scRNA-seq)是指在单个细胞水平上,对转录组进行高通量测序分析的一项新技术,它能够弥补传统高通量测序的局限性,揭示单个细胞的转录组信息,从细胞水平上提供基因差异信息,比较各类细胞转录组之间的差异反映细胞间的异质性。云序生物的单细胞转录组测序服务基本流程包括单细胞分离、mRNA提取与逆转录、cDNA扩增、文库构建、然后测序。与Bulk RNA-seq的基本流程相似,主要区别就在于单细胞分离获取。云序生物单细胞测序建库系统基于液滴微流控技术,采用突破性的微球分子标签技术,携带千万级别的分子标签,能够快速高效地构建高质量的单细胞测序文库。
产品3:RIP测序技术
RIP-Seq (RNA Immunoprecipitation Sequencing)是一种研究细胞内RNA与蛋白质相互作用的关键技术,为解析转录后调控网络提供了强大支撑。该技术借助特异性抗体沉淀目标蛋白及其结合的RNA复合物,随后通过高通量测序分析纯化后的RNA,以研究与已知蛋白互作的目标RNA分子。云序生物利用新版测序仪结合免疫沉淀技术,提供全面、专业的注释和分析,以帮助客户快速解析蛋白质-RNA相互作用,从而阐明其生物学机制。
产品4:mRNA测序技术
信使RNA(messenger RNA,mRNA)是指导合成蛋白质的模板,是把遗传信息从DNA传递到蛋白质的信使。mRNA测序直接对特定样品在某一状态下产生的全部mRNA进行高通量测序,在获得基因表达信息的同时,还能够推测mRNA结构、识别可变剪切位点以及SNP(编码序列单核苷酸多态性)、解析RNA编辑等,从而获取更全面的转录组信息。云序生物mRNA测序服务针对不同样品类型采用差异化的技术策略,不仅能够检测常规样品,还能够检测降解样品和微量样品。云序在测序时采用UMI+Spike-in结合应用,实现测序中的绝对定量,极大地提高了数据的准确性、可比性和生物学意义。此外,云序生物还拥有独特的疾病和基因功能数据库,可以深入分析与特定疾病或信号通路相关的基因的表达、可变剪切以及突变等,从而帮助客户从海量数据中快速找到与自身研究背景相关的候选基因。
如您对相关技术及应用感兴趣,欢迎进一步交流咨询,共同探索这一充满潜力的科学前沿。如果您在研究中遇到任何疑问,可以通过以下方式联系我们:
1.扫码添加小助手【shanghaiyunxu】,一对一咨询;
2.电话咨询:021-64878766,专业团队实时接听,为您解答疑问;
3.访问官网:https://www.cloud-seq.com.cn/,了解更多高通量组学服务详情。
4.邮箱留言:market@cloud-seq.com.cn
我们期待为您服务!
云序生物RNA修饰优势
优势一:RNA修饰产品线齐全,热门修饰IP类/单碱基分辨测序 + IP试剂盒
优势二:300+篇SCI论文、数千例测序样本
优势三:MeRIP-seq全面升级,spike in严格质控IP实验
优势四:测序到验证、靶标定位到分子机制,云序提供一站式服务
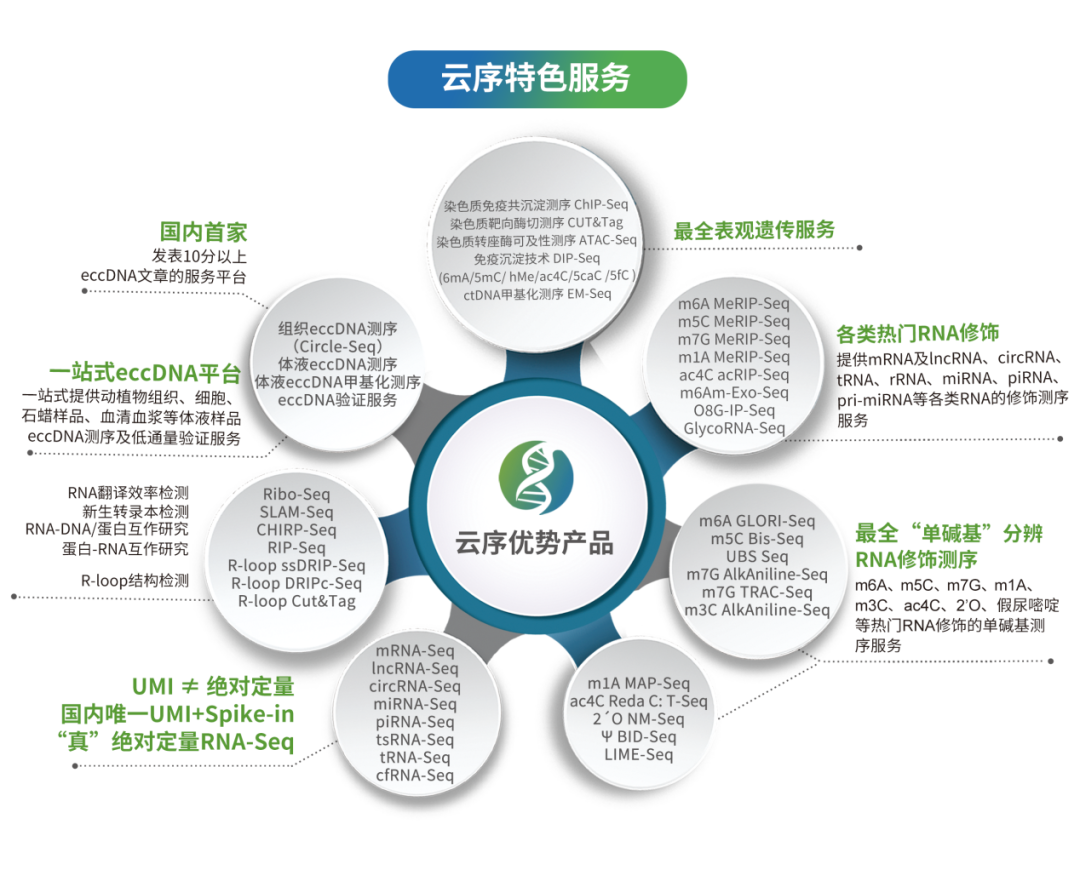
RNA修饰测序是云序生物转录调控及表观组学旗下的重磅产品。在国内,目前云序生物具有全面的RNA修饰测序平台。云序累计助力客户发表300+篇RNA修饰SCI论文,影响因子2000+,累计完成数千例RNA甲基化测序样本,全面覆盖医口、农口等各类样本。文章涉及多种组学联合方案提供RNA修饰一站式服务,包括上游整体修饰水平的检测、RNA修饰高通量测序、测序后的验证实验,还提供“各类分子互作组研究”服务,助力探究深层分子作用机制!
云序生物介绍
上海云序生物科技有限公司(简称“云序生物”)成立于2015年,坐落于上海漕河泾新兴技术开发区,是国家高新技术企业及ISO9001认证单位。公司以RNA修饰组、表观遗传学与新型时空组学为特色,依托高通量测序、质谱技术、生物信息学等平台,致力于为全球科研与临床用户提供专业、精准、系统性的组学解决方案。云序生物以“技术创新+全链条服务”为核心,通过北大授权的GLORI技术应用、临床微量样本技术优化及单细胞-空间多组学整合能力,持续推动表观遗传与转录组学发展,赋能基础科研与精准医疗。
核心优势与创新技术
一、北大授权的GLORI技术与特色平台
1. RNA修饰测序技术
北大授权的GLORI技术:获北京大学《Nature Biotechnology》发表的单碱基分辨率m6A测序金标准方法授权,实现RNA甲基化图谱的精准解析。
全面单碱基修饰检测:提供m6A、ac4C、m5C、m7G、m1A、O8G等全类别RNA修饰单碱基测序服务,覆盖修饰研究全维度需求。
2. 环状DNA研究全链条服务
核心资源:独家代理国际知名品牌A&A Bio的环状DNA富集纯化柱,实现环状DNA的高效富集,为环状DNA测序保驾护航。
系统性服务:全面提供Circle-Seq、体液eccDNA测序、体液eccDNA甲基化测序等特色服务。
3. 临床微量样本解决方案
针对血浆、FFPE、微量细胞等珍贵样本,推出高灵敏度表观组与转录组技术,如cfMeDIP-Seq,cfDNA EM-Seq,超微量MeRIP-Seq,绝对定量cfRNA测序等。
4. 表观遗传组综合研究平台
覆盖DNA/RNA互作、染色质开放性、组蛋白修饰全维度,如:
R-loop研究(ssDRIP-Seq、DRIPc-Seq、R-loop CUT&Tag)
蛋白-RNA互作(RIP-Seq、RNA Pull-down-MS)
染色质可及性(ATAC-Seq)
组蛋白修饰 (CUT&Tag、ChIP-Seq)
DNA修饰(MeDIP-Seq、hMeDIP-Seq和EM-Seq)
5. 前沿时空组学技术
提供各类前沿单细胞多组学与空间原位分析技术,如单细胞转录组测序、单细胞ATAC测序、单细胞ChIP/CUT&Tag测序、空间转录组以及下游验证服务多重免疫组化(mIHC)等。
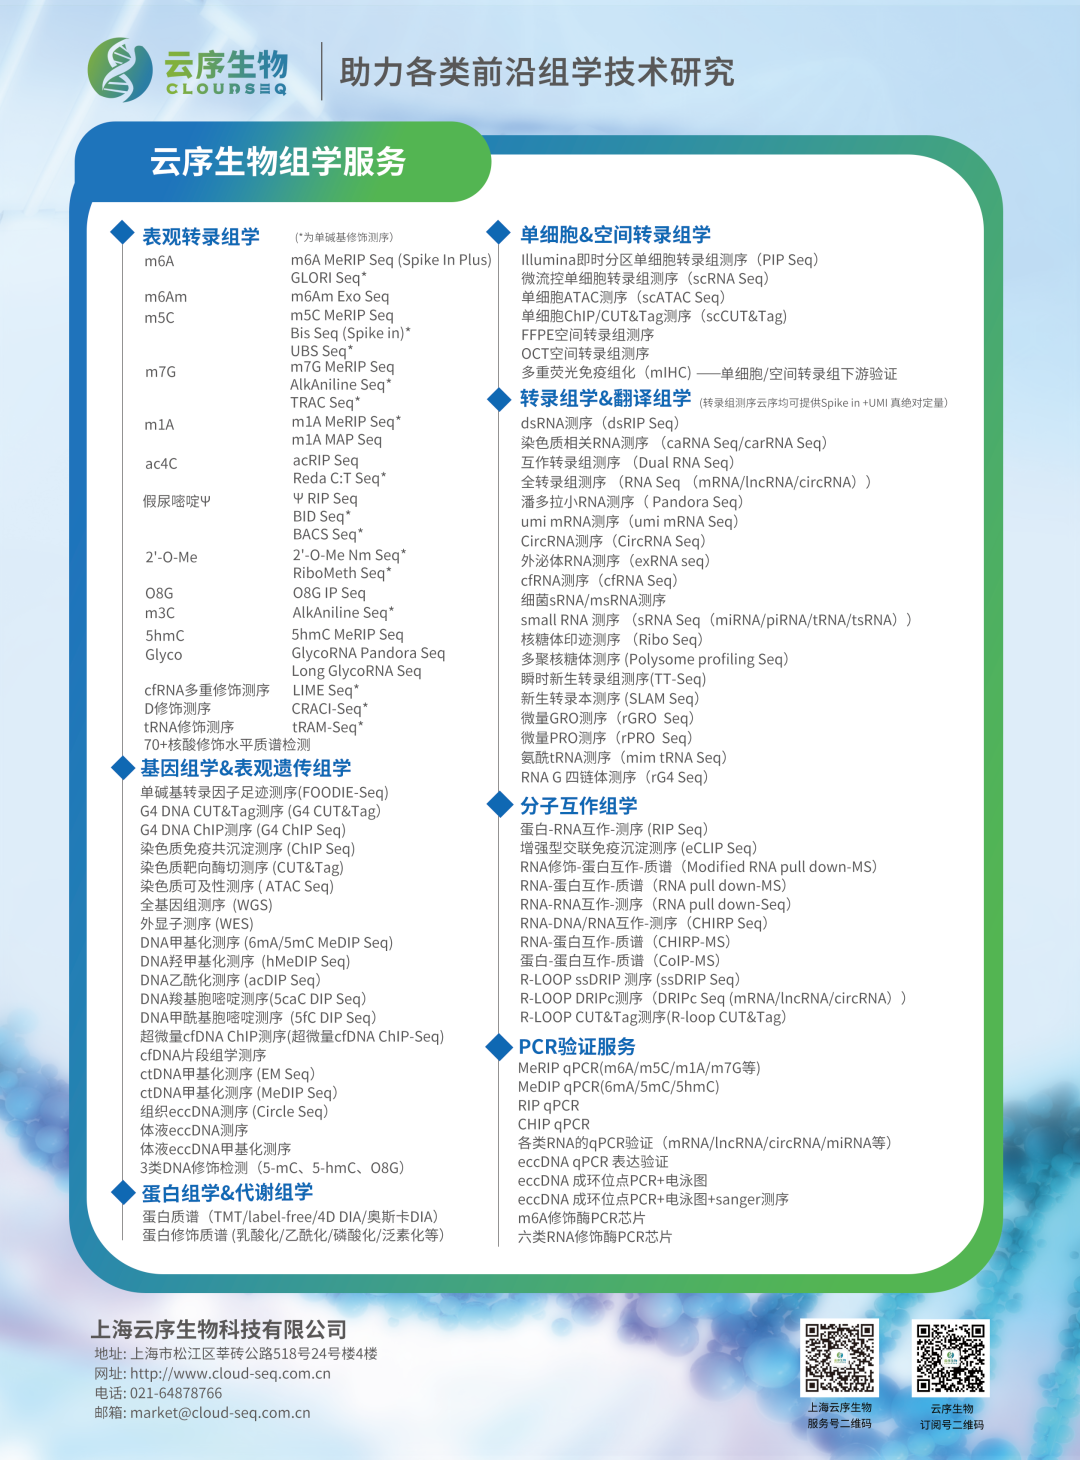
| RNA修饰组 | |
|
|
抗体富集/生物素标记法 |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
| DNA修饰组 | |
|
|
|
|
|
|
|
|
|
| 表观基因组 | |
|
|
|
|
|
|
|
|
|
|
|
|
|
转录调控组和翻译组 |
|
|
|
|
|
|
|
|
|
|
| 分子互作组 | |
|
|
|
|
|
|
|
|
|
| 转录组 | |
|
|
|
|
|
|
|
|
|
dsRNA(dsRIP-Seq) |
|
| 单细胞多组学 | |
| 单细胞转录组测序 | |
|
|
|
|
|
|
| 空间转录组多组学 | |
|
|
|
|
|
|
|
|
|
| 基因组 | |
|
|
|
|
|
|
|
|
|
|
蛋白组 |
|
| 定量PCR服务 | |
|
|
|
# END #
上海云序生物科技有限公司
电话:021-64878766
邮箱:market@cloud-seq.com.cn
Shanghai Cloud-seq Biotech Co.,Ltd.
地址:上海松江莘砖公路518号24号楼4楼
