

IF 81.2《STTT》重磅!m6A MeRIP-seq scRNA-seq:揭秘METTL3驱动胰腺腺泡细胞癌进展的分子机制
相关往期回顾:
《Mol Cancer》重磅发文:从机制到临床新靶点,系统解析RNA修饰在肿瘤演变中的核心价值
Nature子刊m6A新发现! GLORI-Seq助力解析活化CD8+T细胞中mRNA稳定性调控机制
引 言
在肿瘤表观遗传调控网络中,m6A修饰已成为解析基因表达调控的重要维度。作为m6A修饰的核心催化酶,METTL3通过调控mRNA稳定性、翻译效率及降解过程,广泛参与肿瘤发生、进展及治疗耐药等多个环节。
胰腺腺泡细胞癌(ACC)是一种罕见的胰腺恶性肿瘤,临床预后极差。目前ACC发病的分子机制尚不清晰,缺乏有效的治疗靶点与精准干预方案,极大限制了临床治疗效果。近年来,m6A修饰在多种肿瘤中被证实发挥关键调控作用,但METTL3在ACC中的功能尚不清楚。
2026年8月6日,发表于《Signal Transduction And Targeted Therapy》的论文“RNA methyltransferase 3 drives pancreatic acinar cell carcinoma growth and is a therapeutic target”揭示了METTL3介导的RNA甲基化在ACC发生发展过程中的作用。研究发现,METTL3过表达优先甲基化细胞周期、DNA复制及MAPK信号通路相关基因;scRNA-seq进一步揭示ACC细胞与炎症性肿瘤相关成纤维细胞(iCAFs)之间通过PRSS1-F2R-IGF1信号通路形成正反馈环路,持续驱动肿瘤生长。该研究证实METTL3是ACC的可行治疗靶点。
云序生物可提供一站式m6A MeRIP-seq、scRNA-seq测序分析服务:
m6A MeRIP-seq:搭配阳性与阴性Spike-in,精准绘制全转录组m6A甲基化修饰图谱。
scRNA-seq提供两款技术方案:
基于液滴微流控技术的单细胞转录组测序:实现高效转录本捕获和稳定的单细胞文库构建,适配常规组织细胞的单细胞图谱解析;
Illumina PIP-seq(瞬时分区单细胞转录组测序):为微量样本、大规模细胞图谱研究提供新的技术选择,可处理从100个到100万个量级的细胞,满足不同客户的研究需求。
标题:RNA methyltransferase 3 drives pancreatic acinar cell carcinoma growth and is a therapeutic target
发表时间:2026/8/6
发表期刊:Signal Transduction And Targeted Therapy
影响因子:81.2
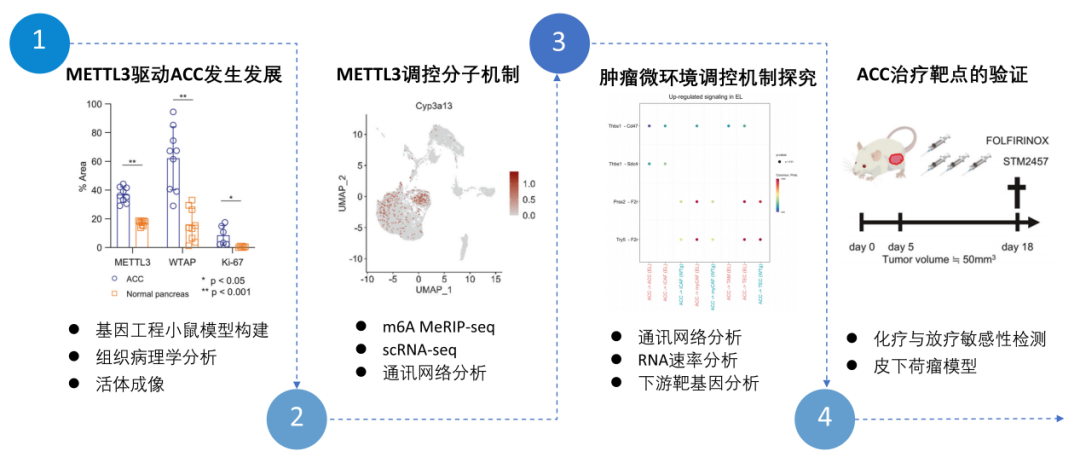
研究方法:m6A MeRIP-seq、scRNA-seq、组织病理学分析、基因工程小鼠模型构建、化疗与放疗敏感性检测等。
文章链接:RNA methyltransferase 3 drives pancreatic acinar cell carcinoma growth and is a therapeutic target
研究摘要
胰腺腺泡细胞癌(ACC)是一种罕见且侵袭性较强的恶性肿瘤,其分子病理机制尚不明确。m6A修饰主要由甲基转移酶3(METTL3)介导,是多种肿瘤的关键调控因子。该研究探究了METTL3介导的RNA甲基化在ACC发生发展过程中的作用。
结果表明,Mettl3过表达显著加速了ACC的病程进展,并增强了肿瘤的侵袭性;SAM结合域对肿瘤形成不可或缺,缺失该结构域的突变体无法诱导癌变。MeRIP-seq显示,Mettl3过表达肿瘤中细胞周期及DNA复制相关基因的m6A修饰水平显著升高。scRNA-seq分析进一步揭示,肿瘤恶性表型增强,具体表现为上皮-间质转化及转化生长因子-β信号通路的异常激活。此外,METTL3可促进PRSS1介导的信号由ACC细胞向iCAFs传递,进而形成涉及IGF1的正反馈环路,驱动肿瘤持续生长。条件性敲除Mettl3可诱导肿瘤细胞迅速凋亡;采用STM2457进行药物抑制,同样能够在胰腺肿瘤中激活caspase‑3/7依赖的细胞凋亡。
综上,METTL3介导的RNA甲基化通过肿瘤细胞内在的细胞周期调控及外在的基质微环境相互作用,共同驱动ACC的病理进程。该研究证实METTL3具备成为潜在治疗靶点的价值,并为METTL3抑制剂在ACC治疗中的临床开发提供了依据。
研究路线
研究结果
METTL3过表达促进小鼠ACC的发生
已有研究表明,METTL3可促进胰腺上皮癌细胞的增殖与侵袭,且METTL3通过调控胰岛素分泌相关基因对维持β细胞功能不可或缺,在新生β细胞发育和功能成熟中发挥关键作用。为实现Mettl3过表达,研究者构建了携带CAG启动子的转基因小鼠(M3小鼠),这些小鼠在出生后22周内未出现肉眼可见的肿瘤。相比之下,弹性蛋白酶1启动子驱动荧光素酶融合SV40大T抗原的胰腺转基因小鼠(EL小鼠,一种快速进展型ACC基因工程模型)在22周龄时出现了明显的肿瘤。SV40病毒表达的大T抗原蛋白(TAg)可抑制TP53和RB抑癌因子,从而破坏其抑癌通路。鉴于EL小鼠被视为ACC模型,该研究进一步探究RNA甲基化是否参与该模型的肿瘤发生。为此,研究者将M3小鼠与EL小鼠杂交,获得双转基因小鼠(WTg;M3/EL1)(图1a)。结果显示,这些同时过表达Mettl3和TAg的小鼠发展出高度侵袭性胰腺癌表型,并在25周内死亡(图1b)。定量分析显示,WTg小鼠中METTL3表达显著升高,且增殖指标Ki-67水平也呈升高趋势。这些结果表明,METTL3显著增强了肿瘤生长。
METTL3的SAM结合结构域对ACC形成不可或缺
为探究作为甲基供体的METTL3的SAM结合结构域是否在胰腺肿瘤形成中发挥作用,研究者构建了SAM结合结构域缺失的突变小鼠(M3del),其缺失了第1129–1650位氨基酸,造成3个SAM结合结构域缺失(图1c)。当与EL小鼠杂交后,M3del/EL小鼠在22周观察期内未出现肉眼可见的肿瘤,而EL小鼠则表现出快速且侵袭性的肿瘤发展。该结果证明了METTL3的SAM结合结构域在ACC发展中的关键作用。值得注意的是,METTL3还通过其N端区域(第1–200位氨基酸)与eIF3h相互作用,该区域在M3del突变体中保持完整。因此,该表型变化主要来源于METTL3催化活性丧失。基于上述结果,WTg小鼠是研究ACC中RNA甲基化发病机制及潜在治疗靶点的理想模型。
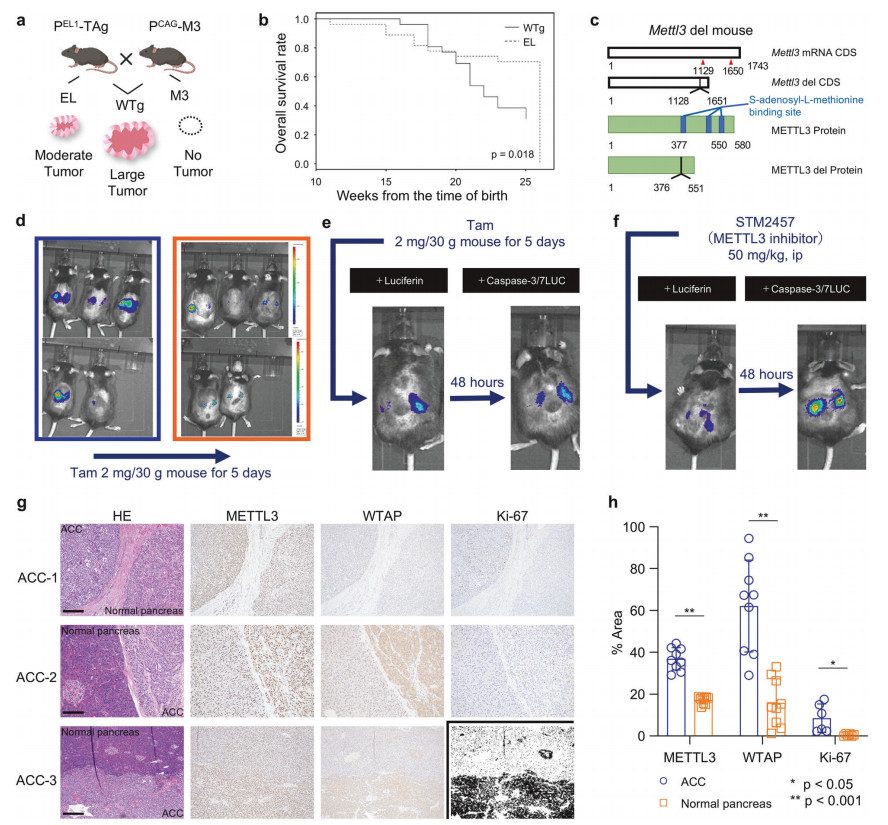
图1. METTL3促进小鼠ACC的发生发展
敲除/抑制METTL3可诱发肿瘤细胞凋亡
为明确METTL3是否参与胰腺癌的维持并评估其治疗靶点潜力,该研究构建了tamoxifen诱导型Pdx1-Cre重组酶介导的转基因Mettl3敲除小鼠(TAg/Mettl3)。tamoxifen给药前,荧光素酶生物发光成像显示腹腔内胰腺肿瘤已部分侵袭周围组织并转移至肝脏(图1d)。tamoxifen给药后,基因分型证实体内tgM3等位基因成功敲除;肿瘤发光信号显著减弱或消失(图1d)。上述结果表明,条件性敲除过表达的转基因Mettl3可破坏ACC肿瘤的维持。
近期研究报道,强效METTL3抑制剂STM2457可有效治疗血液系统恶性肿瘤。该研究进一步在携带tamoxifen诱导型Pdx1-Cre重组酶介导内源性Mettl3敲除的临床前动物模型(TAg/endMettl3: PdxErt2/LSLendM3/EL1)中,评估STM2457是否可诱导凋亡。tamoxifen敲除内源性METTL3后,利用caspase-3/7激活型荧光素前体药物进行生物发光成像,显示肿瘤部位特异性发生凋亡(图1e)。与预期结果一致,给予STM2457处理同样在体内胰腺肿瘤中快速诱导了caspase-3/7依赖性细胞凋亡(图1f)。上述结果证明,靶向METTL3可作为小鼠胰腺腺泡细胞癌潜在的治疗策略。
为明确METTL3在人类ACC中是否发挥核心作用,该研究分析了来自两所大学附属医院的临床标本。对这些样本分别进行了HE染色及METTL3、WTAP、Ki-67和METTL14免疫组化染色。两个队列结果均显示,ACC组织的METTL3、WTAP和Ki-67阳性率均高于正常胰腺与十二指肠组织(图1g、1h)。鉴于WTAP和METTL14与METTL3在m6A甲基转移酶复合物中协同发挥作用,说明m6A修饰在ACC肿瘤发生中具有重要作用。
METTL3调控ACC中细胞增殖相关基因
为解析METTL3影响ACC发生发展的分子机制,该研究对不同小鼠模型系统的肿瘤标本进行了m6A MeRIP-seq。结果显示,tamoxifen诱导的靶向Mettl3敲除后,小鼠肿瘤样本中的甲基化峰显著减弱。对Kras/Mettl3、TAg/Mettl3敲除、TAg/Mettl3、TAg小鼠多组实验样本中存在甲基化峰的基因进行系统分析,发现胰岛素信号通路、胰腺癌相关分子网络的基因存在显著甲基化富集。
为评估Mettl3过表达对基因的影响,该研究对Mettl3过表达小鼠与其他实验组进行了甲基化峰分布的详细比较分析,结果显示:METTL3过表达会优先使细胞周期、核苷酸切除修复、MAPK信号通路相关基因发生甲基化修饰(图2a),提示存在一种靶向调控机制,METTL3可选择性地修饰特定增殖必需基因集。
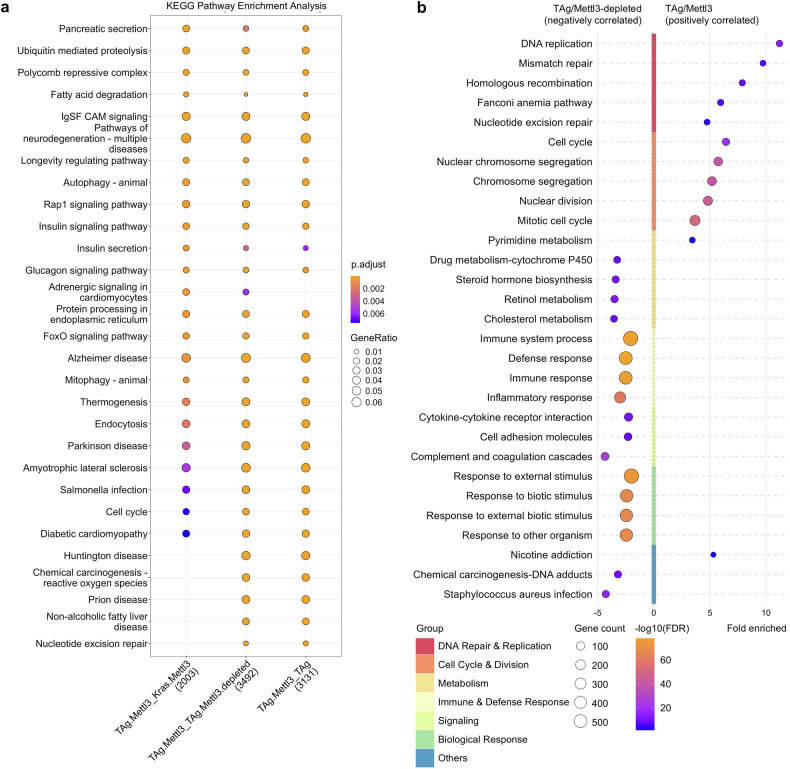
图2. MeRIP-seq和RNA-seq分析揭示ACC中的m6A修饰图谱
差异基因表达分析结果显示,与TAg/Mettl3敲除组相比,TAg/Mettl3组中细胞周期调控和DNA损伤应答相关基因集被激活(图2b),表明Mettl3过表达后细胞增殖相关基因富集。对具有3'UTR峰(推测受METTL3调控)的差异表达基因进行基因本体(GO)分析,结果显示TAg/Mettl3小鼠中细胞周期相关基因网络特异性上调。GSEA分析同样证实,细胞增殖增强、DNA合成、有丝分裂进程相关基因特征显著富集(图S13)。这些实验结果表明METTL3作为一种关键的表观遗传调控因子,通过靶向甲基化ACC中细胞增殖关键基因,促进细胞周期进程并增强细胞增殖。
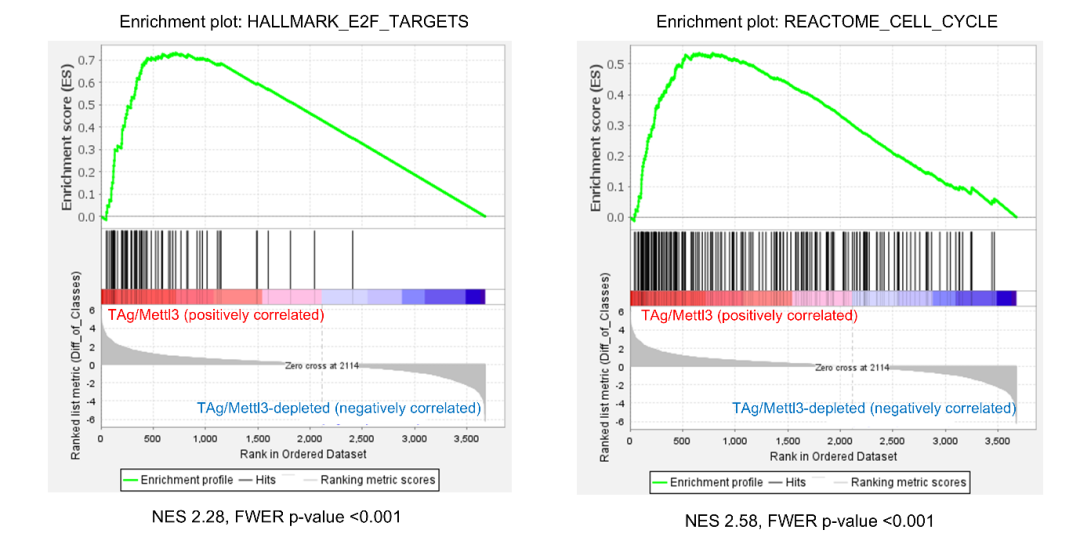
图S13. TAg/Mettl3肿瘤中E2F靶基因与细胞周期通路的GSEA富集图
scRNA-seq分析揭示METTL3过表达ACC中恶性表型增强
为将METTL3介导的RNA甲基化修饰图谱解析到细胞层面信号网络,从机制上阐释肿瘤微环境的交互作用,该研究对WTg(M3/EL1)与EL1转基因小鼠的肿瘤组织样本开展scRNA-seq分析,鉴定了ACC细胞群(图3a)。
鉴定ACC细胞群后,该研究采用单样本基因集富集分析(ssGSEA)对WTg与EL样本进行差异基因表达比较,筛选差异调控的生物学通路。结果显示,WTg组ACC细胞群中与癌症恶性表型和侵袭行为相关的基因集富集评分显著升高(图3b)。进一步证明增殖表型特异性存在于ACC细胞群体内部,而非组织水平的普遍效应。
该研究进一步解析ACC细胞与肿瘤微环境内各类细胞的细胞间通讯网络,发现肿瘤细胞可与成纤维细胞、内皮细胞、浸润巨噬细胞等多种细胞类型产生广泛且复杂的信号交互(图3c、3d)。这些结果表明,Mettl3过表达通过多重协同机制推动肿瘤恶性进展:既可以直接调控肿瘤细胞内部基因表达,改变肿瘤细胞自身生物学行为;还能够显著增强肿瘤细胞与周围肿瘤微环境关键组分的旁分泌、自分泌信号交流,从而在支持肿瘤生长、侵袭和转移中发挥重要作用。
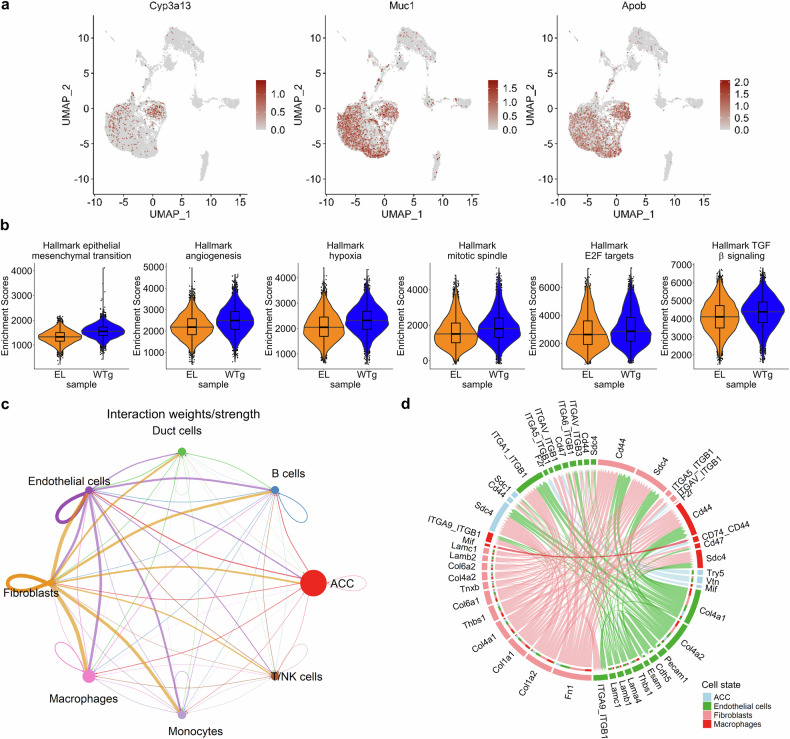
图3. Mettl3过表达小鼠ACC的单细胞RNA测序分析
PRSS1信号介导ACC与炎症性肿瘤相关成纤维细胞的关联
为深入探究肿瘤微环境中的复杂相互作用,该研究鉴定并筛选了多个关键的肿瘤微环境细胞簇,包括肿瘤相关巨噬细胞(TAMs)、炎症性肿瘤相关成纤维细胞(iCAFs)、肿瘤相关肌成纤维细胞(myCAFs)和肿瘤内皮细胞(TECs)。随后,该研究评估了这些肿瘤微环境细胞簇与ACC之间的细胞间通讯模式和信号网络。结果显示,与EL小鼠相比,WTg小鼠中ACC细胞向iCAFs的信号传递显著增强,表明WTg模型中的遗传修饰特异性促进了这一通讯通路(图4a)。该结果提示,信号通讯增强是ACC细胞改造周围微环境、构建适宜肿瘤生长和进展的微环境的重要机制。
通过配体-受体分析及通路映射,该研究鉴定出丝氨酸蛋白酶1(PRSS1)的同源分子TRY10和GM10334是ACC细胞向iCAF群体传递信号的主要介导因子,其通过与凝血因子II凝血酶受体(F2R)相互作用实现信号传导(图4b)。为更全面理解双向通讯网络,该研究进行了互补信号分析,检测了肿瘤微环境组成细胞向ACC细胞的通讯模式。结果显示,WTg小鼠中源自iCAFs的IGF1和HAS1信号通路被特异性激活,表明ACC细胞与iCAFs之间建立了正反馈环路,持续促进肿瘤生长。进一步分析发现,IGF1信号调控与细胞周期进程和增殖密切相关的基因网络,重点调控PLK1(一种调控有丝分裂进程和基因组稳定性的关键细胞周期激酶)。
这些结果表明,METTL3过表达会启动一套复杂信号级联反应:METTL3促进ACC细胞分泌PRSS1,作用于肿瘤微环境,尤其靶向iCAFs;该相互作用进而激活IGF1等促肿瘤信号反馈,在肿瘤细胞与基质微环境之间建立自我强化的通讯网络,最终加速肿瘤生长。
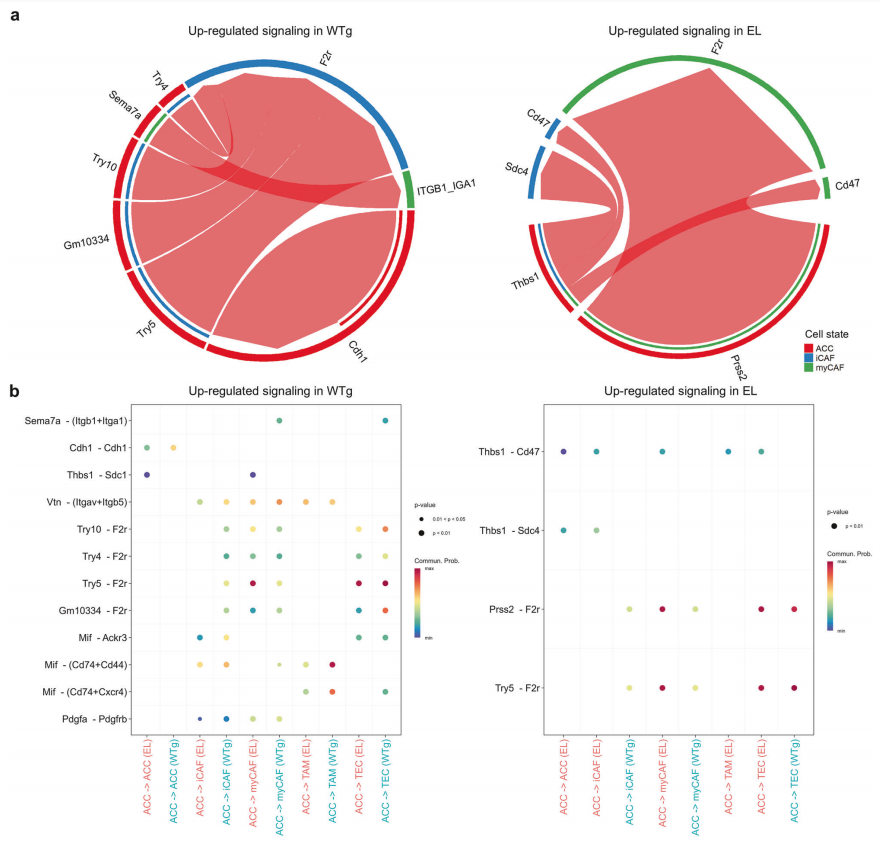
图4. ACC与肿瘤微环境(TME)组分的重新聚类分析
PRSS1高表达的ACC细胞具备干细胞特征
为解析ACC各细胞簇之间的分化动态并理解其发育谱系关系,该研究进行了RNA速率分析。分析结果确定3号细胞簇是ACC细胞分化轨迹的起源,代表相对原始的细胞状态(图5a)。已有研究表明,腺泡细胞中PRSS1/SPINK1比值越高,细胞分化程度越低,干细胞特征越强。定量分析证实,在所有细胞簇中,簇3的Prss1/Spink1比值最高,显著高于其他分化程度较高的细胞簇(图5b)。
对WTg与EL小鼠之间细胞簇分布的比较分析显示,簇3在WTg小鼠中的细胞比例显著高于其他簇,较对照条件富集了约2倍(图5c)。这种选择性富集提示Mettl3过表达特异性促进了具有干性特征的细胞的扩增或维持。
为进一步解析3号细胞簇的功能特性,该研究对簇3中上调的基因进行了GO分析。分析显示,参与腺泡细胞发育过程的基因显著富集,包括胰腺腺泡细胞分化、酶原颗粒组装及消化酶生物合成通路等(图5d)。
上述结果提示,Mettl3过表达可通过表观调控发育转录程序上调Prss1表达。该分子级联反应调控腺泡细胞关键发育通路,促使细胞发生去分化,增强干细胞特征,最终形成原始细胞表型,该表型与胰腺组织再生以及疾病进展密切相关。
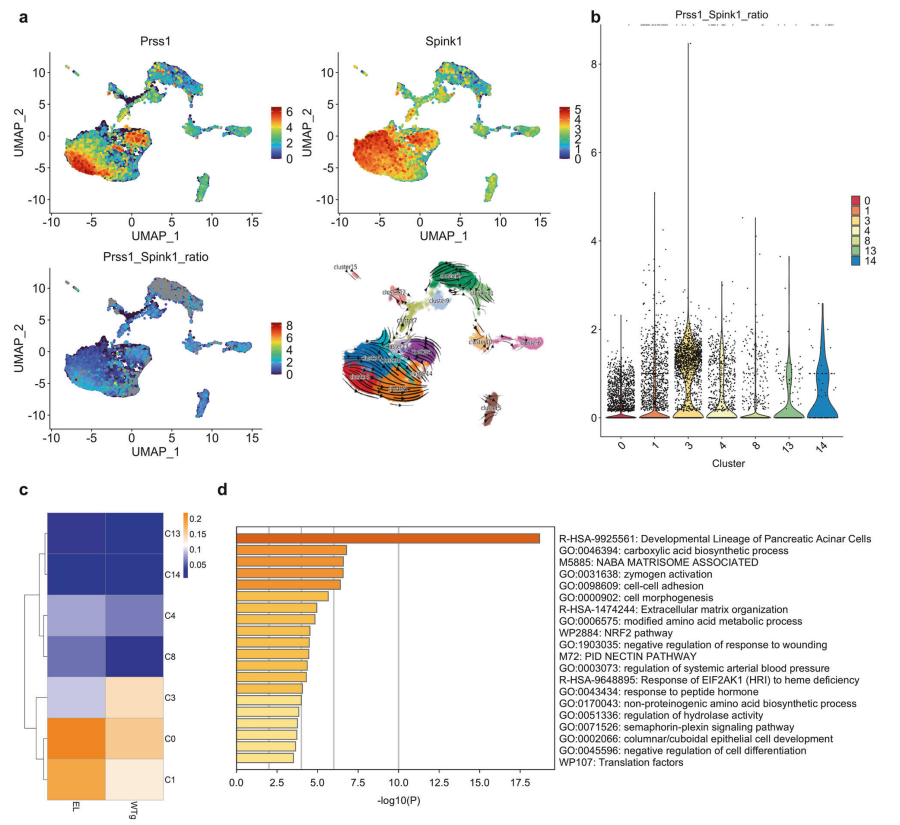
图5. 胰腺腺泡细胞簇分析揭示独特的分子特征与发育轨迹
PRSS1通过成纤维细胞相互作用促进ACC增殖与治疗耐药
为探究PRSS1在ACC中的功能,该研究利用慢病毒载体系统在小鼠ACC细胞系266-6中建立了稳定的PRSS1敲低细胞系。在常规二维单层培养中,PRSS1敲低细胞的增殖速率较对照细胞显著降低(图6a)。为更好地模拟肿瘤微环境,该研究建立与小鼠3T3成纤维细胞共培养的三维体系。球体定量分析显示,PRSS1敲低显著减小了球体尺寸(图6b)。这些结果表明,PRSS1在二维和三维培养条件下均能促进癌细胞增殖。
药物敏感性检测结果显示,敲低PRSS1对单独培养的266-6细胞(二维)的药物敏感性无显著影响;在与3T3成纤维细胞的三维共培养中,PRSS1敲低显著增强了细胞对药物的敏感性(图6c),提示PRSS1介导的ACC细胞与基质成纤维细胞之间的相互作用,对调控药物敏感性、介导治疗耐药起到关键作用。
此外,5-氟尿嘧啶(ACC标准治疗药物)与STM2457(METTL3选择性抑制剂)的联合治疗在对照和PRSS1敲低细胞中均显示疗效。联合指数(CI)分析显示,shPrss1细胞在低药物剂量下、对照组细胞在治疗剂量(>ED25)下可产生协同效应(CI<1)(图6d)。该结果表明,在5‑FU用药方案基础上联合STM2457,是ACC潜在的治疗策略。
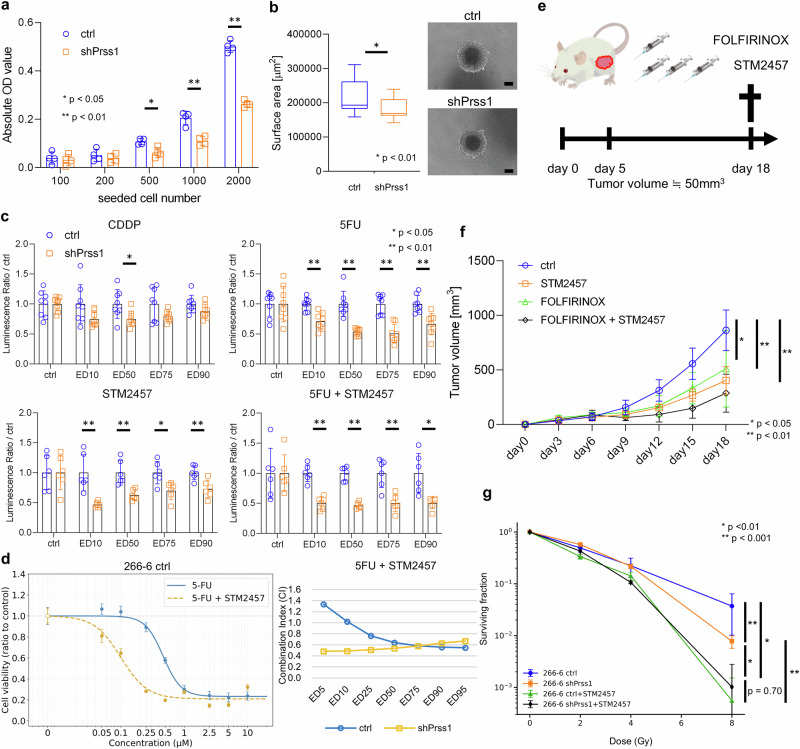
图6. 敲低PRSS1抑制ACC进展并提升细胞治疗敏感性
为在体内验证该联合策略,该研究利用266-6细胞建立了皮下荷瘤模型。结果表明,所有治疗组肿瘤体积均较对照组显著缩小,联合组抑瘤效果最强,但单药与联合治疗间差异未达统计学显著性(图6e、6f)。这些结果提示STM2457可能通过破坏肿瘤微环境介导的耐药效应,从生物学上增强FOLFIRINOX疗效,具备联合用药价值,有待进一步研究。
进一步研究发现,shPrss1细胞表现出IGF1分泌升高,且F2R抑制剂(Vorapaxar)处理显著降低了IGF1分泌,说明F2R激活介导成纤维细胞产生IGF1。为确定IGF1在共培养模型中对细胞增殖的功能影响,该研究使用特异性抗体中和分泌的IGF1,结果显示球体表面积显著减小。STM2457处理对球体生长的抑制效果比单独IGF1中和更强,说明METTL3除IGF1信号轴外,还可通过多条通路调控肿瘤进展。PRSS1属于分泌型蛋白酶,综合以上结果,METTL3介导Prss1的mRNA稳定性提升,促进PRSS1蛋白分泌,进而启动细胞间信号级联,激活基质细胞F2R,建立起细胞内RNA甲基化与细胞外肿瘤-基质通讯的直接功能关联。
该研究还评估了PRSS1表达对266-6细胞放射敏感性的影响。结果显示,PRSS1下调显著增加了放射敏感性(图6g)。综上所述,这些实验结果表明PRSS1是恶性细胞行为的多效促进因子,可增强ACC细胞的增殖速率并介导放射抵抗。此外,该研究数据表明PRSS1通过其与肿瘤微环境中基质成纤维细胞的特定分子相互作用,在化疗耐药中发挥重要作用(图7)。该研究揭示PRSS1在治疗耐药中的复杂功能,提示METTL3是提升ACC治疗效果的潜在靶点。
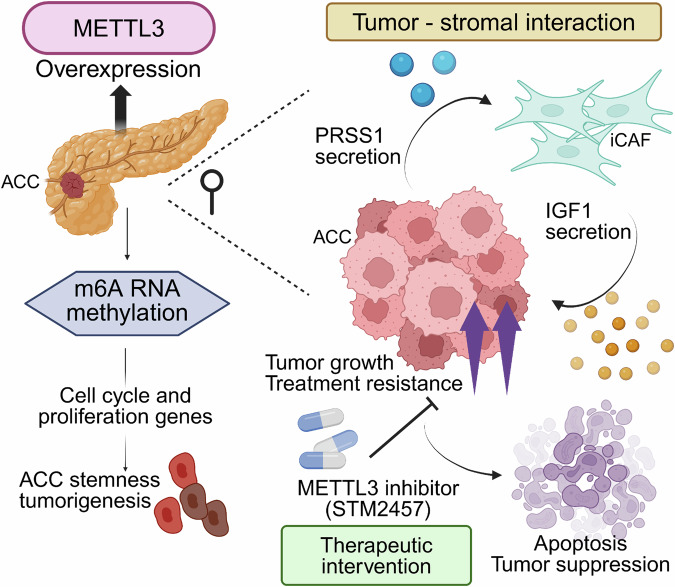
图7. 作用机制模式图
小 结
METTL3过表达驱动ACC发生发展
-
通过构建Mettl3与SV40大T抗原双转基因小鼠模型(WTg),发现METTL3过表达可显著加速ACC的发生,增加肿瘤侵袭性。
-
条件性敲除转基因Mettl3可导致已形成的ACC肿瘤显著消退,表明ACC的恶性维持依赖于METTL3的表达。
METTL3调控ACC中细胞增殖相关基因
-
m6A MeRIP-seq显示METTL3过表达优先甲基化细胞周期、核苷酸切除修复和MAPK信号通路相关基因,敲除METTL3后这些甲基化峰消失。
-
METTL3作为一种关键的表观遗传调控因子,通过靶向甲基化ACC中细胞增殖关键基因,促进细胞周期进程并增强细胞增殖。
METTL3过表达增强ACC恶性表型
-
scRNA-seq分析显示,METTL3过表达的ACC细胞中EMT、TGF-β信号及细胞分裂相关基因集富集评分显著升高,恶性程度增强。
-
细胞间通讯网络分析揭示ACC细胞与微环境中成纤维细胞、内皮细胞和巨噬细胞之间存在广泛的信号交互。
ACC通过PRSS1-F2R轴与iCAFs形成促肿瘤正反馈环路
-
PRSS1是ACC细胞向iCAFs传递信号的关键介导因子,通过激活F2R受体实现通讯。
-
活化的iCAFs反馈分泌IGF1和HAS1,上调ACC细胞中PLK1等细胞周期基因,形成自我强化的正反馈环路,持续驱动肿瘤生长。
PRSS1促进增殖、治疗抵抗,METTL3是提升ACC治疗效果的潜在靶点
-
PRSS1敲低可抑制ACC细胞增殖,在成纤维细胞共培养体系中显著增强对药物和放疗的敏感性,提示PRSS1通过肿瘤-基质交互介导治疗抵抗。
-
STM2457与5-FU或FOLFIRINOX联合用药在体外和体内均表现出协同抑瘤效果,为ACC联合治疗提供了新策略。
云序相关产品推荐
1. 样本兼容范围广
云序生物PIP-seq(瞬时分区单细胞转录组测序)采用Illumina商业化试剂盒,可处理从100个到100万个量级的细胞。不仅适配常规足量组织、细胞系、血液样本,也可适配分选的稀有细胞、微量原代细胞、少量临床穿刺样本等低细胞量珍贵样本。
2. 性价比高
PIP-seq打破传统单细胞测序固定通量、统一高价计费的模式,根据细胞数量选择特定的试剂盒,性价比高。
3. 数据精准可靠
PIP-seq技术体系成熟稳定,水凝胶微球标记均一性强、mRNA捕获效率高,多胞率低至约2%。与传统微流控单细胞平台相比,二者在细胞分群效果、特征标记基因筛选、稀有细胞鉴定、差异表达分析等核心结果上高度一致,数据重复性与可信度高。
4. 高效细胞捕获策略,样本损耗低
PIP-seq采用涡旋乳化的方式进行单细胞捕获,整个流程操作简便、样本处理时间短、死细胞损耗低、转录本扰动小。该策略尤其适用于细胞量有限或状态脆弱的珍贵样本,最大程度保留其原始生物学信息。
产品二:单细胞转录组测序
1. 高效细胞捕获,精准解析细胞异质性
采用优化的微流控分区体系,可实现80%的细胞捕获效率,帮助研究者发现低丰度细胞群体及细胞状态差异。
2. 低双胞率,提高单细胞数据准确性
优化细胞分散及液滴生成体系,实现双胞率<5%,提高细胞注释和下游分析可靠性。
3. 高重复性,保障实验结果稳定可靠
标准化建库流程和稳定的微流控体系降低批次间差异,保证不同实验批次间数据一致性,满足多样本、多组学联合分析需求。
产品三:m6A MeRIP-Seq
1. MeRIP实验质控金标准Spike-In
常规的MeRIP实验通过修饰抗体富集修饰RNA,众所周知,抗体特异性的强弱是决定MeRIP实验是否成功的关键,没有Spike-In,将难以确定实验是否成功、有效RNA是否富集,也难以确定RNA甲基化修饰的丰度和变化,那么就无法保证测序结果真实可靠、质量达标。
云序生物m6A MeRIP-Seq(Spike-In Plus)测序在实验过程中加入两类人工合成的spike in,分别为阳性Spike-In(带m6A修饰的序列)和阴性Spike-In(不带修饰的序列),与样品一起进行MeRIP-Seq实验,根据Spike-In的检测信号对MeRIP实验进行质控,确保实验流程的准确性、重复性及抗体的特异性。
2. 超微量MeRIP-seq
云序生物超微量RNA甲基化测序(超微量MeRIP-seq)对免疫共沉淀和高通量测序步骤进行优化,克服常规抗体富集至少需要100μg总RNA的难题,仅需2μg总RNA即可实验。
产品四:GLORI-Seq
1. 产品优势
GLORI-Seq通过乙二醛和亚硝酸盐的催化体系,对未发生m6A甲基化的腺苷A进行高效的脱氨从而在测序过程中被读成鸟苷(G),形成A-to-G的转化;而发生m6A甲基化的腺苷A在测序后仍被识别成A,从而实现对m6A的单碱基识别。
2. 绝对定量
云序生物在文库准备过程中引入了唯一分子识别符(UMI)序列,消除逆转录过程中由扩增效率引起的偏差,实现m6A的绝对定量。
3. 北大授权
GLORI-Seq由北京大学王晶与伊成器课题组联合开发,首次实现了真正意义的高效率、高灵敏度、高特异性、无偏好性的m6A位点识别,云序生物也于2024年6月正式获得GLORI技术的授权。
如您对相关技术及应用感兴趣,欢迎进一步交流咨询,共同探索这一充满潜力的科学前沿。如果您在研究中遇到任何疑问,可以通过以下方式联系我们:
1.扫码添加小助手【shanghaiyunxu】,一对一咨询;
2.电话咨询:021-64878766,专业团队实时接听,为您解答疑问;
3.访问官网:https://www.cloud-seq.com.cn/,了解更多高通量组学服务详情。
4.邮箱留言:market@cloud-seq.com.cn
我们期待为您服务!
云序生物RNA修饰优势
优势一:RNA修饰产品线齐全,热门修饰IP类/单碱基分辨测序 + IP试剂盒
优势二:300+篇SCI论文、数千例测序样本
优势三:MeRIP-seq全面升级,spike in严格质控IP实验
优势四:测序到验证、靶标定位到分子机制,云序提供一站式服务
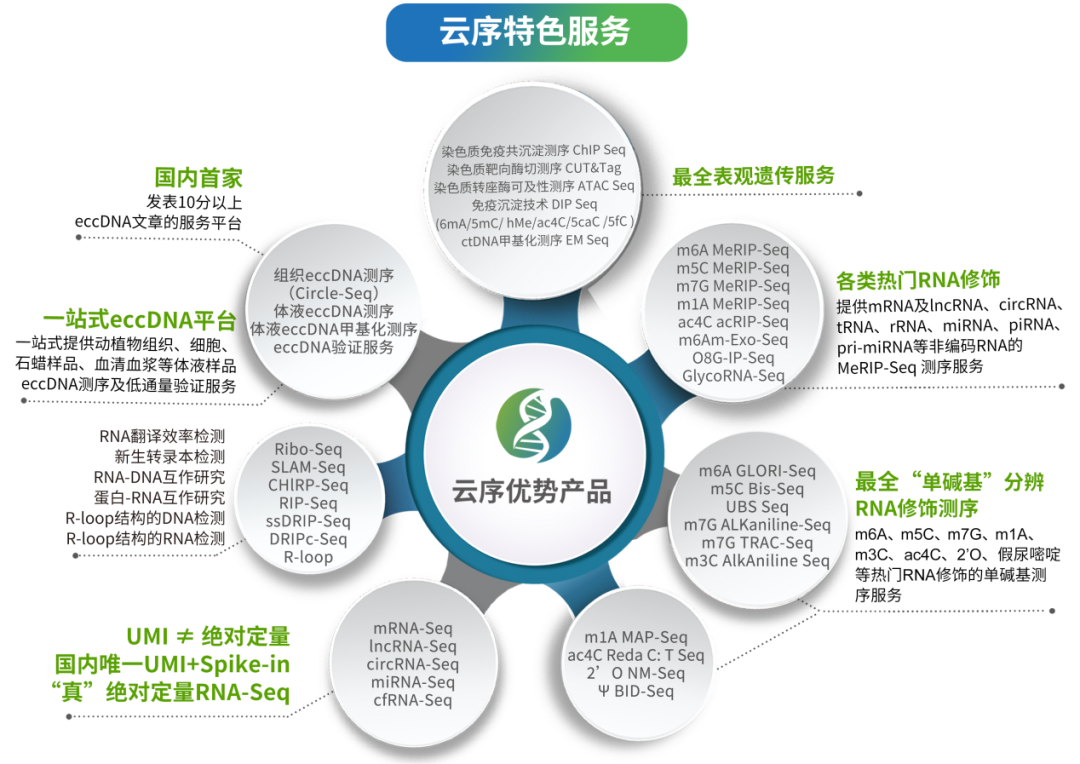
RNA修饰测序是云序生物转录调控及表观组学旗下的重磅产品。在国内,目前云序生物具有全面的RNA修饰测序平台。云序累计助力客户发表300+篇RNA修饰SCI论文,影响因子2000+,累计完成数千例RNA甲基化测序样本,全面覆盖医口、农口等各类样本。文章涉及多种组学联合方案提供RNA修饰一站式服务,包括上游整体修饰水平的检测、RNA修饰高通量测序、测序后的验证实验,还提供“各类分子互作组研究”服务,助力探究深层分子作用机制!如果您有更多的想法及需求,欢迎与我们联系!
云序生物介绍
上海云序生物科技有限公司(简称“云序生物”)成立于2015年,坐落于上海漕河泾新兴技术开发区,是国家高新技术企业及ISO9001认证单位。公司以RNA修饰组、表观遗传学与新型时空组学为特色,依托高通量测序、质谱技术、生物信息学等平台,致力于为全球科研与临床用户提供专业、精准、系统性的组学解决方案。云序生物以“技术创新+全链条服务”为核心,通过北大授权的Glori技术应用、临床微量样本技术优化及单细胞-空间多组学整合能力,持续推动表观遗传与转录组学发展,赋能基础科研与精准医疗。
核心优势与创新技术
一、北大授权的Glori技术与特色平台
1. RNA修饰测序技术
北大授权的Glori技术:获北京大学《Nature Biotechnology》发表的单碱基分辨率m6A测序金标准方法授权,实现RNA甲基化图谱的精准解析。
全面单碱基修饰检测:提供m6A、ac4C、m5C、m7G、m1A、O8G等全类别RNA修饰单碱基测序服务,覆盖修饰研究全维度需求。
2. 环状DNA研究全链条服务
核心资源:独家代理国际知名品牌A&A Bio的环状DNA富集纯化柱,实现环状DNA的高效富集,为环状DNA测序保驾护航。
系统性服务:全面提供Circle-Seq、体液eccDNA测序、体液eccDNA甲基化测序等特色服务。
3. 临床微量样本解决方案
针对血浆、FFPE、微量细胞等珍贵样本,推出高灵敏度表观组与转录组技术,如cfMeDIP-Seq,cfDNA EM-Seq,超微量MeRIP-Seq,绝对定量cfRNA测序等。
4. 表观遗传组综合研究平台
覆盖DNA/RNA互作、染色质开放性、组蛋白修饰全维度,如:
R-loop研究(ssDRIP-Seq、DRIPc-Seq、R-loop CUT&Tag)
蛋白-RNA互作(RIP-Seq、RNA Pull-down-MS)
染色质可及性(ATAC-Seq)
组蛋白修饰 (CUT&Tag、ChIP-Seq)
DNA修饰(MeDIP-Seq、hMeDIP-Seq和EM-Seq)
5. 前沿时空组学技术
提供各类前沿单细胞多组学与空间原位分析技术,如单细胞转录组测序、单细胞ATAC测序、单细胞ChIP/CUT&Tag测序、空间转录组以及下游验证服务多重免疫组化(mIHC)等。
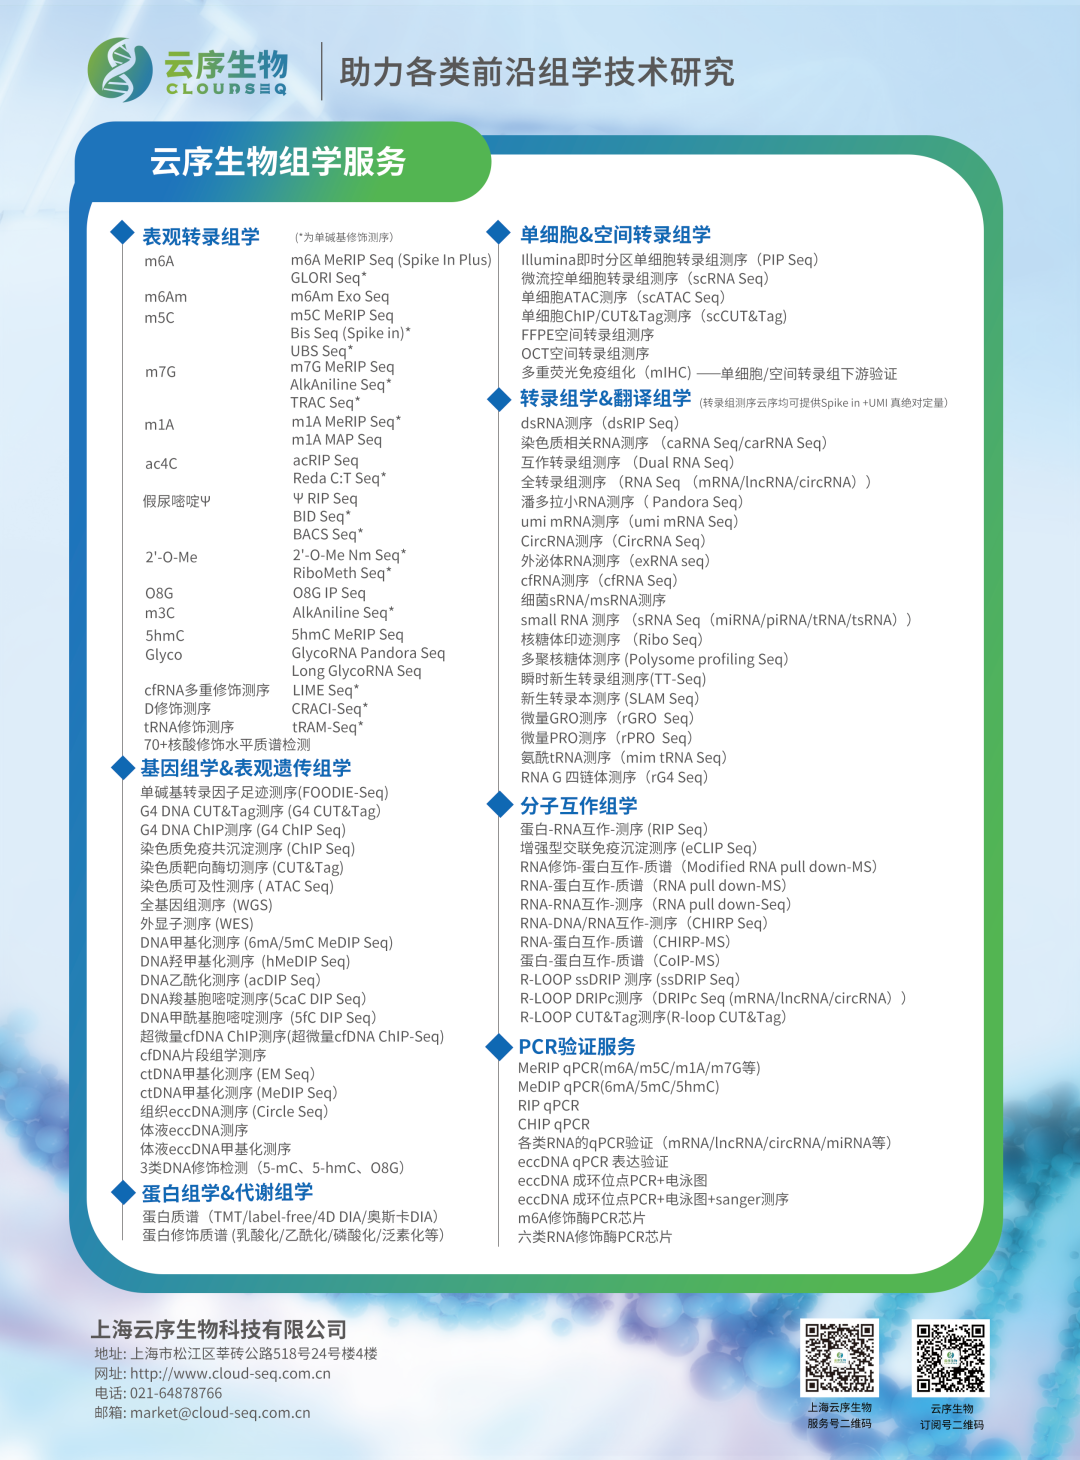
| RNA修饰组 | |
|
|
抗体富集/生物素标记法 |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
| DNA修饰组 | |
|
|
|
|
|
|
|
|
|
| 表观基因组 | |
|
|
|
|
|
|
|
|
|
|
|
|
|
转录调控组和翻译组 |
|
|
|
|
|
|
|
|
|
|
| 分子互作组 | |
|
|
|
|
|
|
|
|
|
| 转录组 | |
|
|
|
|
|
|
|
|
|
dsRNA(dsRIP-Seq) |
|
| 单细胞多组学 | |
| 单细胞转录组测序 | |
|
|
|
|
|
|
| 空间转录组多组学 | |
|
|
|
|
|
|
|
|
|
| 基因组 | |
|
|
|
|
|
|
|
|
|
|
蛋白组 |
|
| 定量PCR服务 | |
|
|
|
# END #
上海云序生物科技有限公司
电话:021-64878766
邮箱:market@cloud-seq.com.cn
Shanghai Cloud-seq Biotech Co.,Ltd.
地址:上海松江莘砖公路518号24号楼4楼
